Emergencia
Dos clases cierran la primera mitad del curso mirando el mismo problema desde fuera: qué se puede desmontar y qué no. El reduccionismo desmonta un reloj, pero no vale para una nube, y las conductas humanas se parecen más a las nubes. La variabilidad de los datos no es ruido del aparato. Con muchas piezas aparecen propiedades que ninguna de ellas tiene, y el conjunto se organiza sin plano ni jefe, como las abejas y las hormigas. De ahí salen cuatro motivos —la exploradora, la bifurcación fractal, la atracción y la repulsión, la ley de potencias— que el curso seguirá usando, y un aviso: lo normal es un promedio.
17 · Emergencia (1)
Más es diferente: nubes, no relojes
El reduccionismo desmonta relojes y explica la COVID; para las conductas humanas hacen falta el caos y la emergencia.
Lectura de 1 minuto
- Tras la caída de Roma en el 410, Europa pierde los libros, la lectura y la lógica: un crimen se «resolvía» tirando al acusado a un lago.
- En 1085 la cristiandad conquista Toledo y su biblioteca devuelve a Europa la causa y el efecto, el silogismo y a los filósofos antiguos.
- Aquino fijó el límite: ni Dios puede hacer un triángulo de más de 180 grados, así que cuando chocan la ciencia y la teología gana la ciencia.
- El reduccionismo parte lo complicado en piezas: así se arregla un reloj parado y así se encontró el receptor del coronavirus en las células pulmonares.
- Un sistema reductivo es predecible punto por punto y permite extrapolar sin calcular antes los pasos intermedios.
- El reduccionismo sirve para un reloj y no para una nube, y las conductas humanas se parecen mucho más a las nubes.
- El caos: la variabilidad de los datos no es ruido de los aparatos, es intrínseca al sistema y no se reduce con una lupa mejor.
- El meta-análisis de testosterona y agresión midió el coeficiente de variación en seis niveles y la variabilidad salió constante.
- La emergencia: con muchas piezas aparecen propiedades que no se predicen desde ellas, y el sistema se autoorganiza sin nadie al mando.
- Abejas y hormigas deciden sin plano ni jefe: bailes que reclutan, feromonas que refuerzan las rutas cortas y una solución casi óptima.
De la hoguera a la biblioteca de Toledo
En el año 410 Roma cae y Europa entra en mil años de ignorancia: sin libros, un asesinato se resolvía tirando al acusado a un lago. El campesino medio casi no salía de su aldea: según Barbara Tuchman, no viajaba más de 12 millas en su vida. En 1085 la cristiandad conquista Toledo y su biblioteca de 60.000 volúmenes devuelve a Europa la lógica, la causa y el efecto. Aquino formula entonces tres reglas de lo que Dios no puede hacer, y la tercera —ni Dios puede hacer un triángulo de más de 180 grados— puso la ciencia por encima de la teología.
El reduccionismo: desmontar el reloj
De esa lógica sale el concepto más importante de la ciencia del último milenio: el reduccionismo. Lo complicado se parte en piezas, y si una pieza sigue siendo complicada, se parte otra vez. Así se averigua por qué se ha parado un reloj: se desmonta y se cambia el diente mellado. Así se encontró la proteína de la cubierta del coronavirus y su receptor en las células pulmonares, de donde salieron la vacuna y los anticuerpos. El sistema promete una relación punto por punto y permite extrapolar sin dar los pasos intermedios.
Relojes y nubes
El reduccionismo tiene un límite claro. Sirve para un reloj parado y no para una nube que no llueve, porque partir la nube en dos mitades no explica nada. El reduccionismo dirá si los pollos picotean por el punto rojo del pico de la gaviota, y sirve para muchísimas cosas, pero las conductas humanas se parecen mucho más a las nubes que a los relojes.
El caos: la variabilidad no es ruido
La primera revolución contra ese esquema es el caos. El científico reductivo llama ruido a sus datos y pide un aparato mejor; el caos responde que la variabilidad es intrínseca al sistema y no se reduce con ninguna lupa. Un meta-análisis lo comprobó: los artículos sobre testosterona y agresión, clasificados en seis niveles, dieron la misma variabilidad en todos. De ahí que haya cosas intrínsecamente impredecibles.
La emergencia: más es diferente
La segunda revolución es la emergencia, y cabe en tres palabras: más es diferente. Con suficientes piezas aparecen propiedades que no se predicen desde ellas, y con suficiente cantidad se inventa una cualidad distinta. El sistema se autoorganiza sin nadie al mando y sin plano. Una molécula de agua no puede estar húmeda: la humedad existe en el montón. Paul Weiss lo dijo del cerebro: se conocen las reglas, pero no hay itinerario, porque el camino se construye al viajarlo.
Una hoja y una patata
En las plantas pasa lo mismo: Paul Green preguntó cuántas reglas necesita una hoja de monocotiledónea para parecer una hoja de monocotiledónea, y bastaban tres. Una rodaja de patata no necesita ningún gen: su solución es la de mínima energía, la silla de montar doble.
Lo que Paul Green decía que basta para que una hoja de monocotiledónea parezca una hoja de monocotiledónea.
Abejas y hormigas: decidir sin jefe
Las abejas eligen colmena sin jefe: dos exploradoras bailan lo que han encontrado y la que vuelve de un sitio mejor baila más tiempo, y «el 99 % de la colmena se decide por la solución correcta», así que la colonia entera se muda al sitio mejor.
De la colmena se muda al sitio mejor sin que ninguna abeja conozca los dos sitios.
Las hormigas hacen lo mismo con feromonas: «cuanto más corto es el camino entre dos puntos, más grueso es el rastro de feromona», y la segunda generación refuerza lo que encuentra —el rico se hace más rico— hasta dar con una solución casi óptima. Con hormigas virtuales, eso es la inteligencia de enjambre de las telecos.
Quiénes salen en esta clase
La Europa de la Edad Oscura
- Barbara W. Tuchman (1912-1989): historiadora estadounidense, dos veces premio Pulitzer, autora de A Distant Mirror: The Calamitous 14th Century (1978). La clase le atribuye el cálculo de las 12 millas de viaje en toda una vida; una búsqueda en el texto completo del libro no encuentra esa afirmación. Wikipedia
La escolástica y la ciencia
- Tomás de Aquino (1225-1274): teólogo escolástico, autor de la Summa Theologiae, que en la cuestión 25 trata de lo que el poder divino no puede hacer. El triángulo de más de 180 grados pertenece a la tradición de la paradoja de la omnipotencia; el paquete de «tres reglas» es de la clase. Summa Theologiae
- Tenzin Gyatso, decimocuarto Dalai Lama (1935-): líder espiritual del budismo tibetano y promotor de los diálogos con neurocientíficos que se celebran desde 1987. Su «si la ciencia demuestra que una creencia budista es errónea, el budismo tendrá que cambiar» es de 2005. dalailama.com
La emergencia
- Philip W. Anderson (1923-2020): físico teórico estadounidense, premio Nobel de Física en 1977. «Más es diferente» es el título de su artículo de 1972 en Science, no de su discurso del Nobel, que se tituló «Local Moments and Localized States». Nobel Prize
- Friedrich Engels (1820-1895): filósofo alemán, coautor de Marx. Su primera ley de la dialéctica es la transformación de la cantidad en cualidad (Anti-Dühring, capítulo X), que la clase resume de memoria sin citarlo. Anti-Dühring
- Paul Alfred Weiss (1898-1989): biólogo del desarrollo austriaco-estadounidense, autor de Principles of Development (1939). Su visión organicista y sistémica del desarrollo enmarca la frase del itinerario, que la fuente no sitúa en ningún texto suyo. Wikipedia
La autoorganización en los seres vivos
- Paul Barnett Green (1931-1998): biólogo vegetal en Stanford y fundador del enfoque biofísico de la morfogénesis de las plantas. Murió en 1998, unos 26 años antes de esta clase. El recuento de tres reglas para una hoja de monocotiledónea no se ha localizado en su obra publicada. Princeton Alumni Weekly
- Karl von Frisch (1886-1982): etólogo austriaco, premio Nobel de Fisiología o Medicina en 1973 por descifrar el baile de las abejas. Ese baile informa de fuentes de alimento; el baile para elegir colmena lo describió Lindauer en los años cincuenta. Nobel Prize
Leer la clase entera, palabra por palabra
Transcripción automática del vídeo, sin corregir: solo la hemos limpiado de ruido del subtítulo, maquetado en párrafos y puesto los títulos que él mismo va anunciando. Los estudios y las citas se dejan en su inglés original y se pueden pulsar.
Traducción al castellano automática: si un matiz importa, comprueba el original inglés.
Un cajón de otra categoría
Shifting to our next topic, one that seems completely from out of left field because we've had our evolution bucket, and we've had our neuro bucket, and our ethology, but we've had all of our buckets there and we are now entering our final bucket before embarking on the second half of the course. This bucket that's kind of in a completely different category than all the others because it is applicable to how you think about all those buckets as follows.
Okay, let's start off with some pretentious European history. Year 410, Rome falls to the Visigoths or the Vandals or whoever did them. Rome falls. We enter a thousand years of like incredible, dark, murky ignorance in Europe, the Dark Ages. And it is hard to appreciate just how devastating that was. The fall of Rome for like people having any insight into how the world worked in Europe for centuries afterward.
The levels of ignorance were astonishing. There were no books. There was no shared knowledge. There was just this vague sense that, ooh, once in the past, in our golden era, we knew all sorts of stuff. We knew how to fly to Neptune. We knew how to cure cancer. We knew how to be teleporting ourselves.
"Oh, let's make Dark Age Europe great again. Go back." Just this sense of like, all sorts of knowledge had been lost. People were just ignorant as hell. Nobody knew how to read. And that gave rise to terms we use today. You go into a court for a hearing. A hearing, because it's all auditory, because nobody can read.
El campesino que no salía de su aldea
The IRS comes for you and they do an audit. They ask you about stuff. Back to that time, because nobody can read, it was all oral tradition. Nobody wrote down anything, that sort of the levels of ignorance. Your average peasant living in some Dark Ages hamlet in the middle of Western Europe, according to the historian Barbara Tuchman, estimated once that your average individual there traveled a maximum of 12 miles in their lifetime from their place of birth.
Provincialism like crazy. You go 50 miles away from this village and the people there have some dialect that's barely understandable between them. Little islands, no shared knowledge, no anything. There was no Western European language at the time that had a word for something like ambition, that had a word for concepts like progress, things of that sort.
Cómo se averiguaba un crimen
And people were just like unbelievably ignorant about how the world works, and logic, and cause and effect, and all of that. And you would be faced, for example, with, you know, a challenge. Somebody's murdered. So you leap into action to figure out what's going on. And the way you figure it out is somebody or other says, "Oh, that person, that's the leper or Roma or Jew did it.
There, they did it." And how do you find out now if they did it? You throw them in a lake. And if they sink to the bottom, that proves that they were guilty. Or you burn them at the stake. And if you see Satan come out of their burning throat, then you know they were actually guilty.
1085: la conquista de Toledo
That's how you figure out stuff. That's how you understand how the world works. And then it all changed dramatically in the year 1085, which was when Christian forces conquered the Moorish, the Muslim, uh, principality, county, whatever, in Spain of Toledo. Toledo, Spain, not Toledo, Ohio. Christians, this was the first time that they managed to, like, conquer any Islamic holdings in Spain.
And that was the start of like all sorts of changes in the geopolitical landscape. And for the purposes of us, the significant consequence of European Christendom conquering Toledo was Toledo had a library. Toledo, Podunk Toledo, out there in terms of the Ottomans and the Moors and all the entire Islamic world of scholarship and knowledge and stuff.
Toledo was like way out in the boondocks. Toledo had a library. And by best estimates, this little out-in-the- boondocks library in Islamic Europe had more books in it than all of Western European Christendom put together, because most of that knowledge had been lost. And best estimates are that the library in Toledo had 60,000 volumes of books at the time.
And the biggest, best library in Christian Europe, which was either in the Sorbonne or in Avignon, had like 2,000 books. There were a bunch of crazy Irish monks who had managed not to get done in by Vikings and stuff, that were hiding manuscripts up there. But the level of like, just sheer, utter ignorance, that was transformed by Western Europe suddenly getting access to a library, a library with all sorts of knowledge about the past.
And this was revolutionary. This was the means by which Christian Europe began to learn about all those philosophers back when, and logicians, and mathematicians. And this was transformative, and suddenly people were learning about things like cause and effect. And suddenly all sorts of approaches started being useful: "Ooh, someone has murdered somebody and we want to find out." And you know what?
A much better way than throwing them in a lake and them sinking to the bottom: go ask people, see if there were any witnesses. Ask them what they saw. This is a way to find out what happened. Logic, cause and effect, syllogism. Suddenly you were able to generalize from one type of observation to more general versions of it that you could extrapolate into things you don't even know about yet.
Aquino y lo que Dios no puede hacer
Whoa. This was totally amazing, transformative, and in lots of ways, this was summarizing this dawning of like, Westernized thought. Ironically stated in Western Christendom. This was best stated about a century after that. Thomas Aquinas came up with three rules of what God can't do. And the first two are just like theological in nature, and like, "God cannot sin." And the other one, "God can't make a boulder that's too heavy for him to lift," and thus, implicit in that, God could never go to a movie and be surprised by the twist ending at it, because God knows already.
God could never get an entertaining evening off at the movies. So the first two were sort of theologically stated ways of the limitations on God. The third one, the third one that Aquinas said overturned all of European thinking when you took it to the logical conclusion, which was: "Even God cannot make a triangle consisting of more than 180 degrees." Whoa.
This was the clearest statement of, when it comes to science and the physical universe and its laws, and math, and geometry, and all of that, and theology—science and knowledge wins. Even God cannot make a triangle which is 181°. And from that moment on, on a certain level, rationality fueled by science and enlightenment and all of that, forever after, would have won.
And this was greatly summarized by the Dalai Lama, who has said, you know, there's going to be inevitably times where science and religion have contradictory interpretations of how things work. And he himself said science is going to be right most of the time. He himself, who has said that, well, if he hadn't gotten handed this like Dalai Lama gig, he would like to have been an engineer or a neuroscientist.
And he spends a lot of time gathering neuroscientists around him to teach him about the nature of the brain. Aquinas, logic, books, history, logical inferences, all sorts of stuff. And that even opened the way for the most incredible sort of things, which is: now there's a murder. And you go and you ask people, "What happened?
Did you see what happened?" And there's a huge problem that would have stopped people in their tracks, which is nobody saw the entire event. "Oh my god, this is hopeless, we could never find out." And then this like triumphant moment of logic: "There's this person who saw parts A, B, and C. And this other person who saw C, D, and E, and this other one who saw E, F, and G.
Oh my god, nobody saw the whole thing." Oh, you can add the observations together and figure out what happened. This was an incredibly important breakthrough. And this began to pave the way for what's the single most important concept in science in like the last thousand years or so: the notion of reductionism. Reductionism.
El reduccionismo
If you want to understand something complicated, you don't find out by burning the person at the stake and seeing if Satan comes out of their nostrils. You don't come out. You break the complicated thing into its component parts. If you want to understand something complicated, break it into its building blocks and study the individual building blocks to understand how the whole system is working.
This was wonderful. This was great. If you happen to get stymied there and gummed up because you still didn't understand this component part, break it into its component parts. And if need be, break those further down until you understand what's going on with the component parts and just add all the pieces back together and you understand the system.
El reloj desmontado
And this was wonderful. This was wonderful for things like, what happens if a clock breaks? A clock. You know those things, they used to have gears and they ticked and gear stuff and all of that. So, you're sitting there in the Renaissance and somebody's clock is broken and you got a choice. What can you do?
Can you try to diagnose it by burning it and seeing if Satan comes out of the gears, or, "Oh, now I know why it didn't work"? You take a reductive approach. You take the clock apart. You break it down to its separate gears and then you find, "Oh, here's the one gear where one of the teeth there is chipped, and as a result, this slips and that comes up and it doesn't work.
And let's replace that one piece and add them all back together and you've got a clock that runs." That's totally wonderful. How do you understand clocks that have stopped running? You take a reductive approach. You understand its component parts. You find the little itty piece that doesn't work, fix that, and put everything back together again, and you should be hunky-dory and ready to go.
El coronavirus y la proteína de la cubierta
And we do that reductive approach big time in our own time period. Ooh. About four years ago, there was an incredibly demanding question which demanded a reductive approach. How on hell does the coronavirus get into lung cells?
And people had to do over there: take apart the virus and study this part and that part and its genes and, "Oh, here's the coat protein. Here's the critical coat protein that binds to this receptor on lung cells and is able to hijack this or that." And oh, a reductive approach. Whoa. How are you going to figure out what's going on with COVID?
Well, we got two options. We can do this reductive stuff and identify a coat, a coat protein, and begin to develop antibodies to it and get a vaccine. Or you could sacrifice a goat and fling its innards around ritualistically afterward in the hopes that the gods will appease the coronavirus. And reductionism is wonderful.
La relación punto por punto
Reductionism has accounted for all sorts of advances, not to mention at the top of it, our life expectancy. So what are the key parts of a reductive approach? Point-for-point relationship. If you understand this one single point in this complicated thing, this one gear in this watch, and you understand this point and this point, and you put all those points together, and you will have knowledge about the workings of the whole thing.
What is implicit in that is as follows: If you know the starting state of a reductive system and you've learned something about how the different components interact, if you know the starting state, you can accurately predict what the entire system is going to be like. And conversely, if it is understood enough at the reductive level, you could look at an entire complex system and understand what the component parts were and how they interacted with each other to make this.
Understand this, you know what's happening here. Understand this, you know how you got there. Predictability in that sense, and that could be seen in sort of your ability to extrapolate. Okay. So we have the completely radical equation here of X = 100. So you are then given the next version, X + 1.
And you sit there and you consult with the wise people, and you cogitate on it, and you reflect, and eventually you figure out, "Ooh, X + 1 = 101." And then they say, "Okay, how about X + 3?" And you say, "103." And you have just done something that is flabbergasting from the standpoint of where knowledge has gotten to in the last thousand years.
You had the answer to X + 1, and then you came up with the answer to X + 3, and you didn't have to first figure out what X + 2 was going to be. You didn't have to do the intervening steps. Instead, you could extrapolate. You could extrapolate. And now knowing this, you know everything.
You know that X plus whatever equals 100 plus whatever. X plus a gazillion, X plus a happy bear equals 100 plus happy bear. You even could know something like, not just X plus a gazillion equals 100 plus a gazillion, but X plus sort of a gazillion will give you 100 plus sort of a gazillion.
Oh, the degree of uncertainty on this side of the equation is directly parallel with the degree of uncertainty you get out of that end. Not only can you extrapolate into the future about things you didn't know before— never before had anyone known that X + 3 equals 103, and they sure as hell never knew it in a way where they didn't have to figure out X + 2 first—not only that, but you could know the parameters of your ignorance by knowing how much noise and uncertainty there was in a starting state.
You would know exactly how much there would be. There was a point-for-point relationship between stuff on either side of these equations, including uncertainty, ambiguity, and all of that. So, that was absolutely spectacular. And hooray for reductionism. And that is a whole lot better that we have vaccines now instead of, you know, goat intestines explaining stuff.
Los límites del reduccionismo
Reductionism will tell you, is this a point mutation or a deletion mutation? Reductionism will tell you whether it's the red dot on the gull's beak that makes the chicks peck at it or whether it's the curve of the beak. Reductionist approaches can tell you a whole lot. But what our next topic is about is, nonetheless, there are strong limits to reductionism.
Relojes y nubes
There are strong realms where you don't figure out what's wrong by breaking something into its component parts. Here's the metaphor. Okay, a block, a clock is broken. You take the pieces apart and you figure it out. You put it back together. Hooray for reductionism. You got a cloud that doesn't rain because of who knows what throughout, or what.
You don't figure out what's going on by dividing the cloud in half and studying the two halves, and if you figure those out, put it back together and you now know how to make clouds rain. And if you don't, break each half into half and study a quarter and break those all into their real component parts.
And eventually you find the gear in the cloud that has a broken tooth and you fix that, and clouds rain again. No, you don't figure out why clouds don't rain with a reductive approach. You sure can figure out why a watch has stopped working with reductionism, but you can't do that for things like clouds.
And the point of this whole next section is, when it comes to the really interesting stuff in us and our behaviors and all of that, we are much more like clouds than we are like watches. Which is to say that the type of cloud machines that we are are understandable on a level that doesn't involve reductionism.
El caos: la primera revolución
So there's at least two revolutions that are pertinent to it. And the first one is the one that I sort of have you guys reading that chapter from that book of mine about chaos, chaoticism. And you want to summarize all of that, but please don't go with the summary. Please read the chapter.
What you see is chaos is this upending of one of the basic tenets of reductionism, which is, okay, you're a scientist and you want to... you're a scientist and you want to measure the effects of A on B. So you give A to a whole bunch of subjects and you measure how much B in everyone happens, and you get an average, an average answer.
Everybody does not show the exact same levels of B. There's variation. And what every good reductive scientist on Earth has been trained to do is look at that and say, "Oh crap, there's something noisy in the system." The measurement tools we have are not great. We need to get a better, bigger, meaner microscope to look at stuff more closely.
All of that, the notion of that variability is just noise. Variability is, "Oh, because I changed my socks this morning and I wore different socks than yesterday. And that's why today's subjects are averaging out to 100.1, and yesterday's subjects were averaging to 100.2. Oh, there's just like noise screwing up our ability to see what's really going on." And what you'll see is the main punchline of chaoticism is that variability is not noise that you want to get rid of.
La variabilidad es intrínseca al sistema
Variability is intrinsic to the system. It is real and in fact it is the most important thing about these systems. What that completely does in is the sort of reductive approach to science saying, "Well, okay, now we've just spent the last 10 years with functional brain imaging where any given pixel on the screen there corresponds to a 100 million neurons' activity.
And whoa, we just got a better fMRI machine. Now, every pixel will correspond to 10 million neurons. So, let's redo all the experiments because there will be less noise now in the measurements because, hooray, thanks to better measurement tools, we're getting rid of that noisy variability and getting closer to being able to see what's actually going on." And what chaos tells you is, insofar as variability is not noise, it is intrinsic to systems and, in fact, what defines them.
It doesn't matter how big of a magnifying glass you look at it with, there's still going to be the same amount of variability. Variability is not something to be gotten rid of by getting better gizmos to look at stuff with. It is always going to be there at whatever scale you are looking at.
La testosterona y la agresión, nivel a nivel
I saw a great example of this about 25 years ago. I had an undergrad hanging out with me who had to have been one of the most diligently obsessive humans on earth, and we came up with an idea for a study which was to test this notion. Let's look at some topic, and a reductive sort of mindset tells you the more closely you look at some biological phenomenon, the more you're looking at the little pieces, the more accurate your answer should be.
The less variability there should be in the results. And we just, you know, picked out of a hat, "Let's look at the effects of testosterone on aggression." So he and I went back and we looked at every paper published 10 years earlier on the subject of testosterone and aggression, and we were able to classify it.
What level? Ooh, big sociological level. Testosterone levels in this type of culture versus that. And does that tell us anything about aggression? The subject on the level of an individual organism. What do testosterone levels in somebody's bloodstream predict about aggression?
At the level of a particular organ, what does levels of glucose consumption by the brain under different testosterone levels? Then on the cellular level, ooh, what is testosterone doing to this neuron that's relevant to aggression?
Biochemical level, testosterone interacting with this receptor. Molecular stuff, X-ray crystallography of, like, studies of the conformation of testosterone receptors and how it bound to that. And we went through every study published that year and there were a huge number of them, and classified them. Is this on the subcellular level, cellular, organ, or organism, or societal level?
And we then looked at all of these studies. By we, I mean he did, because he was incredibly careful and obsessive. And what he did was look at every single data point provided in every one of these papers to measure how much variability there was in the results being presented. If you care about like statistics and stuff, what he was doing was calculating the coefficient of variation for every single mean, seeing how variable were the data being presented in this paper.
And the reductive approach generated a very, very simple prediction, which is, when you looked at the findings coming from like the societal level, different cultures and different diets produce different testosterone levels and different levels of... when you look at those data, they should be really noisy and variable, and you get somewhat cleaner stuff when you look at whole organisms, and even cleaner at a single cell or subcellular as you get more reductive.
Thank god you've got better measurement tools and that noisy variability is being tossed out. That's exactly the prediction you would get from a reductive mindset, which is, whoa, what a terrific advance. We've stopped being sociologists and instead we're molecular biologists. We've gotten much better, more reliable tools. And the answer was the level of variability was basically constant going from the societal level all the way down there.
The closer you looked, you were looking instead of with a questionnaire, you were using binoculars. Instead of binoculars, you were using, you know, an atom smasher. As you got more reductive and more refined, it was the same amount of variability. The variability wasn't noise that you needed to get rid of, noise as the nightmare of every reductive scientist.
It was implicit to the system at every single one of those levels. People who are familiar with this sort of literature will know what I'm kind of saying between the lines is that there's a fractal, scale-free quality to the amount of variability. So that was really interesting. What was really interesting was when we then tried to go and publish it.
So we wrote this up and we sent this to an endocrine journal, and the editor wrote back and said, "Wow, this is such a fascinating study. I've no idea what it has to do with our field though." So unfortunately we can't publish it. So he said, "Oh well." And we sent it off to a neuro journal and the editor said, "Whoa, what a fantastic study.
I have no idea what it has to do with my... Sent to a behavior journal, an evolution." And they all come back, and finally I found this journal called, oh what is it, Essays in Biology and Medicine or something like that, where we sent it to them and they said, "Oh, it's on, we'll publish it." And eventually I figure out I was like the first person under age 90 to ever publish in that journal.
And it got published, and now all these years later, it is like beyond ignored. I think it's been cited twice, and both of those were mistaken citations. Like nobody read it. Nobody paid any attention. Actually, there was this one Russian mathematician during the 2000s who found a paper and got totally obsessed with it and was writing to me like virtually weekly about it, and his English was not great.
So, I was never quite sure either he wanted to adopt me or he wanted me to adopt him. That wasn't completely clear, but other than that, completely ignored because this is how things work in... variability is built on a reductive world of variability you want to get rid of. And what is implicit in that, most importantly at the bottom of the whole pile there, is that there are some things that are intrinsically unpredictable.
Unpredictable not because you need a better next-generation magnifying glass, but because there is intrinsic unpredictability in systems. What we now transition to is the other domain that in our view has blown apart reductionism, and this is this whole field of emergence. Emergence has a very, very simple way of thinking about stuff, which is: more is different.
La emergencia: más es diferente
You want to summarize all of thinking about emergence, and it is in the notion of "more is different." And this was said by Philip Anderson, Nobel Prize-winning physicist, who in his Nobel address, who said that when you got lots of things put together, when you have lots and lots of players in something, when you have lots of component parts, things happen that you could never, ever have predicted from studying the individual pieces.
More is different. Or stated a different way, apparently a way that Friedrich Engels quoted a number of times, is: with enough quantity, you invent a different quality. This is the entire approach of emergence. The notion that more is different. What are we talking about?
El sistema se autoorganiza
This is a science of how, when you have large numbers of component parts, stuff pops out that you could never have predicted, and stuff pops out where, when you look at how it happened, the pieces of what pops out put themselves together. The system self-organizes. This is the key motion with emergence, that you get enough component parts and out of it emerges something that self-organizes into something complicated and ornate and adaptive and all this great stuff that you could never, ever have predicted from looking at the building blocks underneath.
Because, as the other rule of it, the building blocks are idiotic and simplistic and all of that. Here's the way... here's the version that summarizes everything about emergence. You take one ant and you put it on a table, and it wanders around making no sense at all. Like random. You put two ants, you put 10 ants, they're all wandering around randomly.
You put a hundred ants, I don't know, they start like, they find there's a breadcrumb and they make a line to it or something. You put 10,000 ants together, and they form the society that does like amazing architecture and nests, ant tunnels and stuff that are ventilated, and they farm mushrooms underground, and they have different caste systems and this incredibly complicated society.
And the whole thing is, every single ant is still just as incoherent and simplistic when you put it on its own. It has not gotten any smarter when there's 10,000 of them. But when there's 10,000, stuff emerges because more is different. You get qualities where you get self-organization into an ant society. That is the perfect example.
The next feature of emergent systems is once something has emerged on this macro level, the only way to describe it is on the macro level. You cannot figure out what it was going to be simply by describing the component parts, as stated... as developmental biologist Paul Weiss once stated it in the context of brain development, like, you can start off with the simple component parts.
You can start off knowing the rules, but you never get an itinerary. It never tells you what it's going to be like at the end of the road because the road is being constructed while you are traveling on it. Because the road is being constructed in a way that's a function of how you are traveling on it.
La humedad de una sola molécula
And thus there are emergent properties at this self-organizing level that could only be described, only understood at the emergent level. Here's the other cliché of the field. Here's a great example of it. A single molecule of water, H2O, a single molecule of water cannot possess the property of wetness. One molecule of water cannot be wet.
Wetness is an emergent property of lots and lots and lots of molecules of water. And the key thing is that water suddenly doesn't start feeling wet because magically when you put enough of them together, all of a sudden instead of water being H2O, it would suddenly be O2, and that's where wetness comes from.
No, nothing about the fact there's two hydrogens and one oxygen that can predict what wetness is going to feel like. And nothing about it is going to predict that a waterfall basically always looks the same despite the fact that no molecule of water in it that goes over the edge is ever going to do that again.
Sin nadie al mando
This system is robust. It's resilient. It's self-correcting. And all of that is happening at a level where ants are still as stupid as they used to be, and water is still made of H2O. And outcome properties that can only be understood at this emergent level. Now, what we'll see, for my money, the most interesting aspects of emergent systems is not only is there no itinerary, and not only do the component parts not get smarter and all of that, but you'll see over and over self-organization into complex, adaptive whatevers without anyone in charge, without anyone in a position of looking at the various bits of knowledge available and making a decision as to what's the best choice to take.
It just emerges on its own. And what we'll be looking at is what that looks like in ethological context, in the neurobiological context, all of that. And lurking beneath the surface there, implicit in all of that, is if there's no decider, and you don't need to give an itinerary at the beginning because the road doesn't even exist yet, there's no blueprint, there's just some simple starting instructions, but there is no blueprint.
And as I say for the first time here, remarkable subtlety. What that also implies is if there's no blueprints, you don't need to hypothesize a blueprint maker, but we will get back to that. Okay, so what does this sort of emergent, robust stuff look like?
Paul Green was a plant developmental biologist, and he was like the weirdest guy on earth. We would have, like, our annual faculty retreat, which is sort of show-and-tell, "What I did this summer." Each person gets up and they talk for 10 minutes and say, "Well, this past year my lab cloned this, and we sequenced that, and we did all of that, and here's the structure of this gene, and here's how many exons and introns it is." And go through that, and everyone, you know, you clap a little bit, and then you go get a Danish or something.
¿Cuántas reglas necesita una hoja?
And you hear the next person, and then Paul Green would get up and he would say something like, "Well, last year my group was thinking how many rules does a monocot leaf need in order to look like a monocot leaf?
And we think it only needs three rules." And then he would sit down and everybody say, "What the...?" And like, this was just so bizarre. What? He didn't clone anything. He didn't sequence something. He didn't measure the binding affinity of some plant hormone for its receptor. How many rules does it take for this type of leaf to look this way?
And we think there's only three rules. That's what he was doing. So he would give this wonderful lecture whose math I understood absolutely zero. He would talk about some sort of physical pressure, physics sort of thing. Suppose you've got a disc, a disc, and Paul Green would then take you to, "So let's do an experiment with it.
Let's... what if you heat the system?" And it would take you through these unbelievably complicated equations that would promptly lose me about how heat playing out on this material versus along the edge would work out differently. And then he would do this incredible sort of tour de force math thing and show at the end that the only mathematical solution is something that looks not at all like this.
The only mathematical solution is that this thing reaches its lowest energy conformation. It forms a double saddle. That's great. Who knows where the math came from, but okay, that's how it resolves that. And then he would show us a potato chip. And the only mathematical solution for how this slice of potato is going to deal with this thermal challenge is to buckle into a double saddle thing.
And then you put it in your can of Pringles and it fits right in there. And whoa, that's totally cool. Essentially, how in hell did that slice of potato know how to form a double saddle?
Was it genetic instructions? No, there's like no genes and it's a slice of potato and it just happens because this is how the physics of it play out. And the only way you could heat a slice of potato and get an outcome, the only thing it will look like at the end is a double saddle like a potato chip.
Sin plano y sin autoridad central
How do you wire up things as efficiently as possible without a blueprint and without a central authority? So, first example of this, how do bees figure out when it's time for them to move their colony, their beehive to a new location?
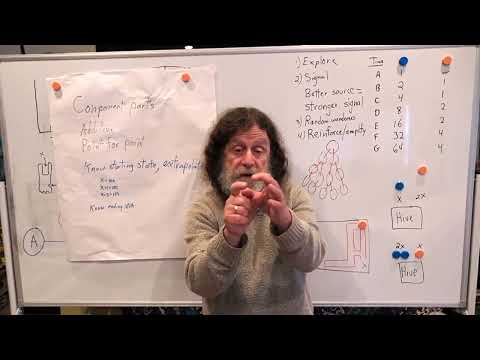
How do they do it? As follows. So, here's the hive, and you send out two scouts, and one of them finds a possible location this far away, and the other one finds a possible location twice as far away. What do they do at that point?
They do our ethology, Karl von Frisch. They come back to the hive and they start dancing. And they dance as to, where is this source? How far you go, go in this direction, go with this angle. It's this wonderful... of a new potential home, and this is an equally wonderful potential. And look at something that happens here.
The way it works now is we are relying upon random interactions, which is this bee comes back and dancing around the hive there, and all the other bees in there are just wandering around in random frenzy. And the rule is if they bump into this dancing bee, they decipher what she is saying and they fly out to the same place.
Thus, random movement of first generation of scouts and the second generation that randomly bumps into what this particular scout was doing and gets recruited into giving the same message as this scout. So, let's play this out. Because this is twice as far from the hive as this one, it takes twice as long for this to do a going out, checking out the place, and coming back and broadcasting it as this one.
So, let's go through different... at time A, this individual has already gotten back to the hive. This one is not yet back. Time B. As a result of this one dancing, it has now recruited another bee. This one has just gotten back and started dancing. At this point, we're now up to four bees here, because this one takes twice as long to get to.
It hasn't recruited the second one yet. And so on. And what you soon get is 99% of the hive settles on the right solution, which is go to the place that's closer. And nobody had any knowledge of both of these locations. All that happened is because of this pattern here, because of these interactions, out emerged the optimal solution and the whole beehive picks up and flies away.
Bailar más tiempo por una fuente mejor
Next version of it, of how bees find a great new place. And this time the two potential sources are equally distant, but this one is twice as good as this one. And you have to get a means of linking that as follows. The better the source that you have found, the louder you broadcast that information.
What do we mean in the case of bees? Bees come back from finding something, they come in and they dance, and they stop after a while because they get tired or bored. And the deal is, if this site is twice as good by whatever criteria as this site, this bee, when she comes back, is going to dance for twice as long.
And as a result of that, there's twice the likelihood of some random other bee bumping into her and getting recruited. And thus, there's now two of them that are dancing longer and that much more likely to get... simply because they broadcast the signal for a longer time. They recruit more individuals, who recruit more individuals, and then before you know it, you have solved the exact same thing, and the entire colony goes to the preferable site.
Nobody had any knowledge of both of these sites. There was no blueprint. There was no decider. There was no master plan. There was no itinerary beforehand saying, you know, "You're going to wind up here at the end." It simply emerged as a function of: you broadcast a better signal louder, longer, more intensely, whatever.
And when you have enough component parts working that way, you will emerge. You will self-organize with an optimal solution. So that's how bees do it. Ants, ants, let's look at ants now. So ants have a similar sort of problem, which is they want life to be easy and successful and leave on copies of their genes.
So you've got ants, and suppose there's six different places outside their ant home where there's a food source. There's six different potential foraging sites. And ant scouts... note again this notion... the first generation of scouts, ant scouts go out there and they explore these different foraging sites. And what they want to do is not only find the good ones, but they want to find the shortest path connecting all of these because ants have little legs.
There are actually entomologists who study, like, how much energy it takes for an ant to walk this many inches in the Amazon versus the Gobi Desert. And you've got six different possible foraging sites. And there's a gazillion different paths that an ant can take to visit each one of them and see what's available today.
And that little ant who could doesn't want to waste energy by returning to any place more than once. And there are a huge number of ways. In this case, five factorial, which is 120. There's 120 different ways, routes that an ant could take to visit each site without repeating. There're 120. So, we get to 10 foraging sites and we're up to, I don't know, 100 million.
El problema del viajante
We get to 15 and we're at 100 billion or something. We have what is called a version of the "traveling salesman problem," which has been vexing mathematicians for centuries, which is: here's a number of possible sites and you want to go to each one only once, but go to each one of them.
How do you figure out the shortest path to do that with? And centuries into the traveling salesman problem, there is no standard solution to it. And one solution is you just brute-force it. You get some computer that just, like, churns out every single one of the hundred billion possibilities and tells you, "Oh, this is the best one." This is not a subtle solution.
La inteligencia de enjambre
If you want to get close to the optimal solution to this traveling salesman problem, what you do is you ask ants to solve it for you. And they do it in a way that is now referred to as "swarm intelligence," with virtual ants. A lot of companies now use it when programming, trying to solve optimization patterns like this.
Here's what the rule is. You get a first generation, a first generation of ants who go out and just explore all these different sites. And the deal is that as they go from one site to another, they leave a pheromone trail. Their, their butts has some pheromone gland and they lean it down and run it along the ground there.
So they are leaving a trail of all the places they've gone to. So this is your pioneer generation. Now we need to do an equivalent to: "If it's a better source, you dance longer," a way by which a good route is broadcast more loudly than a lesser route. And how is that done?
The shorter the path between two points, the thicker the pheromone trail is that the ant leaves. Which makes perfect sense. If you are leaving a pheromone trail going from here to here versus from here to here, because this is half the distance, you can put out two times as much pheromones with each step, is going to be twice as thick as this one.
Better, shorter routes have thicker pheromone trails. And now this has to translate into a time element. Just like here, the thicker the pheromone trail, the longer it takes for it to evaporate. So now you let loose your second generation of ants. And these are the ones who wander randomly. Just like the bees randomly bumping into one of the dancers and being recruited.
Now you let a gazillion ants just go over this area. And their only rule is if you bump into a pheromone trail, you join it and you add your pheromones to it. And what we've now seen is, as time goes by, you're more likely to bump into one of the better, shorter routes than the longer ones, because the longer ones have been evaporating because they have less pheromone per unit ground there.
You bump into it, and this is one that has lasted longer, and as a result you make it last even longer by adding your pheromones to it. That much more likely than someone else. And you run enough rounds of this and out emerges the optimal solution, or, as shown with ants, typically 99% of the way to the optimal solution.
They solve the traveling salesman problem here with these simple rules. A pioneer generation that broadcasts what they find out as a function of how great the news is. A random wandering population which is set up in a "rich get richer" scheme to reinforce the better routes and add their voice to it. And out of this, ants come up with this in a fraction of the time that your computer would.
And once again, there's no blueprint and there's no blueprint maker. It just emerges. And this is again sufficiently the case that, like, telecommunication companies that are trying to wire up a whole bunch of radio towers and... they have to have cables. They want to minimize the amount of money they have to spend on cables.
What's the most optimal way to do this? And they run virtual ants doing virtual swarm intelligence to solve it for them. So we've now just seen a first pass of what emergence looks like. What we will pick up on Friday is how the same thing then plays out, the same exact rules, when slime molds learn how to solve mazes.
El cerebro hace lo mismo
And then most remarkably, we'll see how the brain does the exact same thing. Pioneer generation that broadcasts louder for better findings, random wanderers which reinforce the good messages for how your cortex wires up. And this is just the first step at seeing it's the same rules. Okay, now that the animals are baying, it's the end of class, so we will pick up on this on Friday.
Un cajón de otra categoría
Pasamos ahora al siguiente tema, que parece salido por completo de la nada, porque ya hemos tenido nuestro cajón de la evolución, y hemos tenido el cajón de la neurociencia, y el de la etología, pero ya tenemos todos nuestros cajones ahí colocados y ahora entramos en el último cajón antes de emprender la segunda mitad del curso. Este cajón pertenece a una categoría completamente distinta de todas las demás, porque se aplica a cómo piensas sobre todos esos otros cajones, del modo siguiente.
Vale, vamos a empezar con un poco de historia europea pretenciosa. Año 410: Roma cae ante los visigodos o los vándalos o quien fuera que lo hiciera. Roma cae. Entramos en mil años de una ignorancia increíble, oscura y turbia en Europa: la Edad Oscura. Y cuesta apreciar hasta qué punto fue devastador. La caída de Roma, en cuanto a que la gente tuviera alguna idea de cómo funcionaba el mundo en Europa durante los siglos posteriores.
Los niveles de ignorancia eran asombrosos. No había libros. No había conocimiento compartido. Había solo esa vaga sensación de que, uy, una vez en el pasado, en nuestra era dorada, sabíamos todo tipo de cosas. Sabíamos volar a Neptuno. Sabíamos curar el cáncer. Sabíamos teletransportarnos.
«Ay, vamos a hacer grande otra vez la Europa de la Edad Oscura. Volvamos atrás.» Solo esa sensación de que se había perdido todo tipo de conocimiento. La gente era ignorante como ella sola. Nadie sabía leer. Y de ahí vienen términos que usamos hoy. Entras en un juzgado a una vista. Una vista, porque todo era de oído, porque nadie sabía leer.
El campesino que no salía de su aldea
Viene Hacienda a por ti y te hace una auditoría. Te pregunta cosas. Volvemos a aquella época: como nadie sabía leer, todo era tradición oral. Nadie escribía nada, ese era el nivel de ignorancia. Tu campesino medio, viviendo en alguna aldea de la Edad Oscura en medio de Europa occidental, según la historiadora Barbara Tuchman, que calculó una vez que tu individuo medio de allí viajaba como máximo 12 millas en toda su vida desde su lugar de nacimiento.
Provincialismo a lo bestia. Te alejas 50 millas de esta aldea y la gente de allí tiene un dialecto que apenas se entiende entre ellos. Islas pequeñas, ningún conocimiento compartido, nada de nada. No había en aquella época ninguna lengua de Europa occidental que tuviera una palabra para algo como la ambición, que tuviera una palabra para conceptos como el progreso, cosas de ese tipo.
Cómo se averiguaba un crimen
Y la gente era increíblemente ignorante sobre cómo funciona el mundo, y sobre la lógica, y la causa y el efecto, y todo eso. Y te enfrentabas, por ejemplo, a un desafío. Alguien ha sido asesinado. Así que te lanzas a la acción para averiguar qué está pasando. Y la manera de averiguarlo es que alguien dice: «Ah, ese de ahí, lo hizo el leproso o el gitano o el judío.
Ese, ese lo hizo.» Y, ¿cómo averiguas ahora si lo hizo? Lo tiras a un lago. Y si se hunde hasta el fondo, eso demuestra que era culpable. O lo quemas en la hoguera. Y si ves salir a Satán de su garganta en llamas, entonces sabes que efectivamente era culpable.
1085: la conquista de Toledo
Así se averiguan las cosas. Así se entiende cómo funciona el mundo. Y entonces todo cambió drásticamente en el año 1085, que fue cuando las fuerzas cristianas conquistaron el principado, el condado, lo que fuera, musulmán, mahometano, de Toledo, en España. Toledo, España, no Toledo, Ohio. Los cristianos: era la primera vez que conseguían conquistar alguna posesión islámica en España.
Y aquello fue el comienzo de todo tipo de cambios en el panorama geopolítico. Y para lo que nos interesa a nosotros, la consecuencia significativa de que la cristiandad europea conquistara Toledo fue que Toledo tenía una biblioteca. Toledo, la Toledo de provincias, allá en medio de los otomanos y los moros y todo el mundo islámico de erudición y conocimiento y esas cosas.
Toledo estaba en el quinto pino. Toledo tenía una biblioteca. Y según las mejores estimaciones, esa pequeña biblioteca perdida en el quinto pino de la Europa islámica tenía más libros que toda la cristiandad de Europa occidental junta, porque buena parte de aquel conocimiento se había perdido. Y las mejores estimaciones son que la biblioteca de Toledo tenía 60.000 volúmenes en aquella época.
Y la mejor y mayor biblioteca de la Europa cristiana, que estaba en la Sorbona o en Aviñón, tenía unos 2.000 libros. Había un montón de monjes irlandeses chiflados que habían conseguido no acabar en manos de los vikingos y esas cosas, y escondían manuscritos allí arriba. Pero el nivel de ignorancia pura y dura fue lo que se transformó cuando Europa occidental tuvo de pronto acceso a una biblioteca, una biblioteca con todo tipo de conocimiento sobre el pasado.
Y esto fue revolucionario. Fue el medio por el que la Europa cristiana empezó a aprender sobre todos aquellos filósofos de antaño, y lógicos, y matemáticos. Y esto fue transformador, y de pronto la gente aprendía cosas como la causa y el efecto. Y de pronto todo tipo de enfoques empezaron a ser útiles: «Uy, alguien ha asesinado a alguien y queremos averiguarlo.» ¿Y sabes qué?
Una manera muchísimo mejor que tirarlos a un lago y que se hundan hasta el fondo: ve a preguntar a la gente, mira si había testigos. Pregúntales qué vieron. Esta es una manera de averiguar qué pasó. Lógica, causa y efecto, silogismo. De pronto podías generalizar a partir de un tipo de observación a versiones más generales de ella, que podías extrapolar a cosas que ni siquiera conoces todavía.
Aquino y lo que Dios no puede hacer
Uala. Esto era totalmente asombroso, transformador, y en muchos sentidos resumía el amanecer del pensamiento occidentalizado, dicho irónicamente dentro de la cristiandad occidental. Y lo mejor se enunció aproximadamente un siglo después. Tomás de Aquino formuló tres reglas sobre lo que Dios no puede hacer. Y las dos primeras son de naturaleza teológica, cosas como «Dios no puede pecar». Y la otra, «Dios no puede hacer una piedra tan pesada que él no pueda levantar», y por tanto, implícito en eso, Dios nunca podría ir al cine y sorprenderse con el giro final, porque Dios ya lo sabe.
Dios nunca podría pasar una noche entretenida en el cine. Así que las dos primeras eran maneras teológicamente formuladas de las limitaciones de Dios. La tercera, la tercera que dijo Aquino, dio la vuelta a todo el pensamiento europeo cuando la llevabas a su conclusión lógica, y era: «Ni siquiera Dios puede hacer un triángulo que sume más de 180 grados.» Uala.
Esta fue la declaración más clara de que, cuando se trata de la ciencia y el universo físico y sus leyes, y las matemáticas, y la geometría, y todo eso, y la teología, gana la ciencia y el conocimiento. Ni siquiera Dios puede hacer un triángulo de 181°. Y desde ese momento, en cierto nivel, la racionalidad alimentada por la ciencia y la ilustración y todo eso habría ganado para siempre jamás.
Y esto lo resumió estupendamente el Dalai Lama, que ha dicho, ya sabes, que va a haber inevitablemente momentos en los que la ciencia y la religión tengan interpretaciones contradictorias de cómo funcionan las cosas. Y él mismo ha dicho que la ciencia va a tener razón la mayoría de las veces. Él mismo, que ha dicho que, bueno, si no le hubieran encasquetado este chiringuito de Dalai Lama, le habría gustado ser ingeniero o neurocientífico.
Y pasa mucho tiempo reuniendo neurocientíficos a su alrededor para que le enseñen la naturaleza del cerebro. Aquino, la lógica, los libros, la historia, las inferencias lógicas, todo tipo de cosas. Y eso abrió el camino incluso a la cosa más increíble, que es: ahora hay un asesinato. Y vas y preguntas a la gente: «¿Qué ha pasado?
¿Viste lo que pasó?» Y hay un problema enorme que habría detenido a la gente en seco, que es que nadie vio el suceso entero. «Ay, Dios mío, esto no tiene remedio, jamás podremos averiguarlo.» Y entonces llega ese momento triunfal de la lógica: «Está esta persona que vio las partes A, B y C. Y esta otra que vio C, D y E, y esta otra que vio E, F y G.
Ay, Dios mío, nadie vio la cosa entera.» Ah, puedes sumar las observaciones y averiguar qué pasó. Fue un avance increíblemente importante. Y esto empezó a allanar el camino hacia lo que es el concepto más importante de la ciencia en los últimos mil años aproximadamente: la noción de reduccionismo. Reduccionismo.
El reduccionismo
Si quieres entender algo complicado, no lo averiguas quemando a la persona en la hoguera y viendo si le sale Satán por las narices. No sale. Descompones la cosa complicada en sus partes componentes. Si quieres entender algo complicado, descomponlo en sus piezas básicas y estudia cada pieza básica por separado para entender cómo funciona el sistema entero.
Esto era maravilloso. Era estupendo. Si resulta que te atascas ahí y te quedas bloqueado porque sigues sin entender esa parte componente, descomponla en sus partes componentes. Y si hace falta, descompón esas aún más hasta que entiendas qué pasa con las partes componentes, y luego vuelve a juntar todas las piezas y entiendes el sistema.
El reloj desmontado
Y esto era maravilloso. Era maravilloso para cosas como: ¿qué pasa si se rompe un reloj? Un reloj. Ya sabes, esas cosas que tenían engranajes y hacían tic-tac y todo eso. Así que estás ahí sentado en el Renacimiento y a alguien se le ha roto el reloj y tienes una elección. ¿Qué puedes hacer?
¿Puedes intentar diagnosticarlo quemándolo y viendo si sale Satán de los engranajes, o «ah, ahora ya sé por qué no funcionaba»? Adoptas un enfoque reductivo. Desmontas el reloj. Lo descompones en sus engranajes separados y entonces encuentras: «Ah, aquí está el engranaje en el que un diente está mellado, y como resultado esto resbala y aquello se levanta y no funciona.
Y cambiemos esa pieza y volvamos a montarlas todas juntas y tienes un reloj que funciona.» Eso es totalmente maravilloso. ¿Cómo entiendes los relojes que han dejado de funcionar? Adoptas un enfoque reductivo. Entiendes sus partes componentes. Encuentras la piececita que no funciona, la arreglas y lo vuelves a montar todo, y deberías quedar como nuevo y listo para funcionar.
El coronavirus y la proteína de la cubierta
Y aplicamos ese enfoque reductivo a lo grande en nuestra propia época. Uy. Hace unos cuatro años hubo una pregunta increíblemente exigente que requería un enfoque reductivo. ¿Cómo demonios entra el coronavirus en las células pulmonares?
Y la gente tuvo que hacer allí lo siguiente: desmontar el virus y estudiar esta parte y aquella y sus genes y: «Ah, aquí está la proteína de la cubierta. Aquí está la proteína crítica de la cubierta que se une a este receptor de las células pulmonares y es capaz de secuestrar esto o lo otro.» Y, ah, un enfoque reductivo. Uala. ¿Cómo vas a averiguar qué está pasando con la COVID?
Bueno, tenemos dos opciones. Podemos hacer estas cosas reductivas e identificar una cubierta, una proteína de la cubierta, y empezar a desarrollar anticuerpos contra ella y conseguir una vacuna. O podrías sacrificar una cabra y arrojar sus vísceras por ahí ritualmente después, con la esperanza de que los dioses aplaquen al coronavirus. Y el reduccionismo es maravilloso.
La relación punto por punto
El reduccionismo ha explicado todo tipo de avances, por no hablar de la cima de todos ellos: nuestra esperanza de vida. Así que, ¿cuáles son las partes clave de un enfoque reductivo? La relación punto por punto. Si entiendes este único punto de esta cosa complicada, este único engranaje de este reloj, y entiendes este punto y este punto, y juntas todos esos puntos, tendrás conocimiento sobre el funcionamiento de la cosa entera.
Lo que está implícito en eso es lo siguiente: si conoces el estado inicial de un sistema reductivo y has aprendido algo sobre cómo interactúan los distintos componentes, si conoces el estado inicial, puedes predecir con precisión cómo va a ser el sistema entero. Y a la inversa, si se entiende lo suficiente en el nivel reductivo, podrías mirar un sistema complejo entero y entender cuáles eran las partes componentes y cómo interactuaron entre sí para producir esto.
Entiende esto, y sabes qué está pasando aquí. Entiende esto, y sabes cómo llegaste ahí. Previsibilidad en ese sentido, y eso se veía en tu capacidad de extrapolar. Vale. Así que tenemos aquí la ecuación totalmente radical de X = 100. Y entonces te dan la versión siguiente, X + 1.
Y te sientas ahí y consultas con los sabios, y le das vueltas, y reflexionas, y al final averiguas: «Uy, X + 1 = 101.» Y entonces te dicen: «Vale, ¿y X + 3?» Y dices: «103.» Y acabas de hacer algo que deja pasmado, desde el punto de vista de hasta dónde había llegado el conocimiento en los últimos mil años.
Tenías la respuesta para X + 1, y luego sacaste la respuesta para X + 3, y no tuviste que averiguar primero cuánto iba a ser X + 2. No tuviste que hacer los pasos intermedios. En vez de eso, podías extrapolar. Podías extrapolar. Y ahora, sabiendo esto, lo sabes todo.
Sabes que X más lo que sea es igual a 100 más lo que sea. X más un chorrocientos, X más un oso feliz es igual a 100 más oso feliz. Incluso podrías saber algo como: no solo que X más un chorrocientos es igual a 100 más un chorrocientos, sino que X más más o menos un chorrocientos te dará 100 más más o menos un chorrocientos.
Ay, el grado de incertidumbre a este lado de la ecuación es directamente paralelo al grado de incertidumbre que sacas por aquel extremo. No solo puedes extrapolar hacia el futuro cosas que antes no sabías —jamás nadie había sabido que X + 3 fuera 103, y desde luego jamás lo habían sabido de una manera en la que no tuvieran que averiguar primero X + 2—, no solo eso, sino que podías conocer los parámetros de tu ignorancia sabiendo cuánto ruido y cuánta incertidumbre había en un estado inicial.
Sabrías exactamente cuánta iba a haber. Había una relación punto por punto entre las cosas a un lado y otro de estas ecuaciones, incluida la incertidumbre, la ambigüedad y todo eso. Así que aquello fue absolutamente espectacular. Y hurra por el reduccionismo. Y es muchísimo mejor que ahora tengamos vacunas en vez de, ya sabes, intestinos de cabra explicando las cosas.
Los límites del reduccionismo
El reduccionismo te dirá si esto es una mutación puntual o una deleción. El reduccionismo te dirá si es el punto rojo del pico de la gaviota lo que hace que los pollos picoteen, o si es la curva del pico. Los enfoques reductistas pueden decirte muchísimas cosas. Pero de lo que trata nuestro siguiente tema es de que, aun así, hay límites fuertes al reduccionismo.
Relojes y nubes
Hay ámbitos fuertes en los que no averiguas qué va mal descomponiendo algo en sus partes componentes. Aquí está la metáfora. Vale, un bloque, un reloj está roto. Desmontas las piezas y lo averiguas. Lo vuelves a montar. Hurra por el reduccionismo. Tienes una nube que no llueve por quién sabe qué de arriba abajo, o qué.
No averiguas qué pasa dividiendo la nube por la mitad y estudiando las dos mitades, y si las entiendes, volverlas a montar y ya sabes cómo hacer que las nubes lluevan. Y si no, parte cada mitad por la mitad, estudia un cuarto y descompón todo eso en sus verdaderas partes componentes.
Y al final encuentras el engranaje de la nube que tiene un diente roto y lo arreglas, y las nubes vuelven a llover. No, no averiguas por qué no llueven las nubes con un enfoque reductivo. Puedes averiguar por qué un reloj ha dejado de funcionar con el reduccionismo, eso sí, pero no puedes hacerlo con cosas como las nubes.
Y el sentido de toda esta próxima sección es que, cuando se trata de lo realmente interesante de nosotros y de nuestras conductas y todo eso, nos parecemos mucho más a las nubes que a los relojes. Es decir, que el tipo de máquinas nube que somos se pueden entender en un nivel que no pasa por el reduccionismo.
El caos: la primera revolución
Así que hay al menos dos revoluciones que vienen al caso. Y la primera es la que os tengo más o menos leyendo, ese capítulo de ese libro mío sobre el caos, el caoticismo. Y si quieres resumir todo eso, vale, pero no te quedes con el resumen, por favor. Lee el capítulo, por favor.
Lo que ves es que el caos es la subversión de uno de los principios básicos del reduccionismo, que es: vale, eres científico y quieres... eres científico y quieres medir los efectos de A sobre B. Así que les das A a un montón de sujetos y mides cuánto B le pasa a cada uno, y obtienes una media, una respuesta media.
No todo el mundo muestra exactamente los mismos niveles de B. Hay variación. Y lo que todo buen científico reductivo del planeta ha sido entrenado para hacer es mirar eso y decir: «Ay, mierda, hay algo ruidoso en el sistema.» Las herramientas de medición que tenemos no son buenas. Necesitamos un microscopio mejor, más grande y más malo para mirar las cosas de más cerca.
Todo eso, la idea de que esa variabilidad es solo ruido. Variabilidad es: «Ah, es que esta mañana me he cambiado los calcetines y llevaba otros distintos que ayer. Y por eso los sujetos de hoy dan una media de 100,1, y los de ayer daban una media de 100,2. Ah, es solo ruido que nos fastidia la capacidad de ver lo que de verdad está pasando.» Y lo que verás es que el mensaje central del caoticismo es que la variabilidad no es ruido del que quieras deshacerte.
La variabilidad es intrínseca al sistema
La variabilidad es intrínseca al sistema. Es real y, de hecho, es lo más importante de estos sistemas. Lo que eso desmonta por completo es el enfoque reductivo de la ciencia que dice: «Bueno, vale, nos acabamos de pasar los últimos 10 años con imagen cerebral funcional, en la que un píxel cualquiera de la pantalla corresponde a la actividad de 100 millones de neuronas.
Y uala, acabamos de conseguir una máquina de resonancia magnética mejor. Ahora cada píxel corresponderá a 10 millones de neuronas. Así que vamos a repetir todos los experimentos, porque ahora habrá menos ruido en las mediciones, porque, hurra, gracias a mejores herramientas de medición nos estamos deshaciendo de esa variabilidad ruidosa y acercándonos a poder ver lo que de verdad está pasando.» Y lo que te dice el caos es que, en la medida en que la variabilidad no es ruido, es intrínseca a los sistemas y, de hecho, es lo que los define.
No importa lo grande que sea la lupa con la que lo mires: va a seguir habiendo la misma cantidad de variabilidad. La variabilidad no es algo de lo que te deshagas consiguiendo cachivaches mejores para mirar las cosas. Va a estar siempre ahí, en cualquier escala a la que mires.
La testosterona y la agresión, nivel a nivel
Vi un gran ejemplo de esto hace unos 25 años. Tenía a un estudiante de grado pasando el rato conmigo que tenía que ser uno de los humanos más diligentemente obsesivos de la Tierra, y se nos ocurrió una idea para un estudio que pusiera a prueba esta noción. Miremos algún tema, y una mentalidad más bien reductiva te dice que cuanto más de cerca miras un fenómeno biológico, cuanto más miras las piececitas, más exacta debería ser tu respuesta.
Cuanta menos variabilidad debería haber en los resultados. Y elegimos, ya sabes, a bulto: «Miremos los efectos de la testosterona sobre la agresión.» Así que él y yo volvimos atrás y revisamos todos los artículos publicados 10 años antes sobre la testosterona y la agresión, y fuimos capaces de clasificarlos.
¿Qué nivel? Uy, el gran nivel sociológico. Niveles de testosterona en este tipo de cultura frente a aquella. Y, ¿nos dice eso algo sobre la agresión? El sujeto, en el nivel de un organismo individual. ¿Qué predicen los niveles de testosterona en el torrente sanguíneo de alguien sobre la agresión?
En el nivel de un órgano concreto: ¿qué hace el consumo de glucosa del cerebro con distintos niveles de testosterona? Luego, en el nivel celular, uy, ¿qué le está haciendo la testosterona a esta neurona que sea relevante para la agresión?
Nivel bioquímico, la testosterona interactuando con este receptor. Cosas moleculares, cristalografía de rayos X, o sea, estudios de la conformación de los receptores de testosterona y de cómo se unía a eso. Y repasamos todos los estudios publicados aquel año, y había un montón enorme de ellos, y los clasificamos. ¿Está esto en el nivel subcelular, celular, de órgano, de organismo o de sociedad?
Y luego miramos todos esos estudios. Con «miramos» quiero decir que los miró él, porque era increíblemente meticuloso y obsesivo. Y lo que hizo fue mirar cada punto de datos de cada uno de esos artículos para medir cuánta variabilidad había en los resultados que se presentaban. Si te interesan las estadísticas y esas cosas: lo que estaba haciendo era calcular el coeficiente de variación de cada media, viendo qué variables eran los datos presentados en cada artículo.
Y el enfoque reductivo generaba una predicción sencillísima, que es: cuando mirabas los hallazgos que venían del nivel sociológico, distintas culturas y distintas dietas producen distintos niveles de testosterona y distintos niveles de... cuando miras esos datos, deberían ser muy ruidosos y variables, y obtienes cosas algo más limpias cuando miras organismos enteros, y aún más limpias en una sola célula o en lo subcelular, conforme te vuelves más reductivo.
Gracias a Dios que tienes mejores herramientas de medición y que esa variabilidad ruidosa se está tirando a la basura. Esa es exactamente la predicción que sacarías de una mentalidad reductiva, que es: uala, vaya avance tan tremendo. Hemos dejado de ser sociólogos y ahora somos biólogos moleculares. Hemos conseguido herramientas mucho mejores y más fiables. Y la respuesta fue que el nivel de variabilidad era básicamente constante desde el nivel sociológico hasta abajo del todo.
Cuanto más de cerca mirabas, en vez de usar un cuestionario usabas prismáticos. En vez de prismáticos usabas, ya sabes, un rompeátomos. Conforme te volvías más reductivo y más refinado, era la misma cantidad de variabilidad. La variabilidad no era ruido del que necesitaras deshacerte, el ruido como la pesadilla de todo científico reductivo.
Era inherente al sistema en cada uno de esos niveles. Quien esté familiarizado con este tipo de literatura sabrá que lo que estoy diciendo un poco entre líneas es que hay una cualidad fractal, sin escala, en la cantidad de variabilidad. Así que aquello fue muy interesante. Lo que fue realmente interesante fue cuando intentamos publicarlo.
Así que lo escribimos y lo enviamos a una revista de endocrinología, y el editor respondió diciendo: «Uala, este estudio es fascinante. Aunque no tengo ni idea de qué tiene que ver con nuestro campo.» Así que por desgracia no podemos publicarlo. Y él dijo: «Ah, bueno.» Y lo enviamos a una revista de neuro y el editor dijo: «Uala, qué estudio tan fantástico.
No tengo ni idea de qué tiene que ver con mi... Enviado a una revista de conducta, de evolución.» Y todas vuelven, y al final encontré esa revista llamada, ay, ¿cómo era?, Essays in Biology and Medicine o algo así, y se lo enviamos y dijeron: «Ah, vale, lo publicamos.» Y con el tiempo descubrí que fui como la primera persona menor de 90 años que publicaba en esa revista.
Y se publicó, y ahora, todos estos años después, está más que ignorado. Creo que lo han citado dos veces, y las dos fueron citas equivocadas. O sea, nadie lo leyó. Nadie le prestó atención. En realidad hubo un matemático ruso en los años 2000 que encontró el artículo y se obsesionó totalmente con él, y me escribía prácticamente todas las semanas sobre él, y su inglés no era bueno.
Así que nunca estuve del todo seguro de si quería adoptarme o quería que yo lo adoptara a él. Eso no quedaba del todo claro, pero aparte de eso, completamente ignorado, porque así funcionan las cosas en... la variabilidad está construida sobre un mundo reductivo de variabilidad de la que quieres deshacerte. Y lo que está implícito en eso, lo más importante, en el fondo de todo el montón, es que hay algunas cosas que son intrínsecamente impredecibles.
Impredecibles no porque necesites una lupa de nueva generación mejor, sino porque hay una imprevisibilidad intrínseca en los sistemas. A lo que pasamos ahora es al otro dominio que, en nuestra opinión, ha hecho saltar por los aires el reduccionismo, y es todo este campo de la emergencia. La emergencia tiene una manera muy muy sencilla de pensar las cosas, que es: más es diferente.
La emergencia: más es diferente
Si quieres resumir todo el pensamiento sobre la emergencia, está en la noción de «más es diferente», y esto lo dijo Philip Anderson, físico ganador del Premio Nobel, que en su discurso del Nobel dijo que cuando juntas muchas cosas, cuando tienes muchísimos jugadores en algo, cuando tienes muchas partes componentes, pasan cosas que jamás, jamás habrías podido predecir estudiando las piezas individuales.
Más es diferente. O dicho de otra manera, al parecer una manera que Friedrich Engels citó un montón de veces: con suficiente cantidad, inventas una cualidad distinta. Este es el planteamiento entero de la emergencia. La noción de que más es diferente. Y ahora, ¿de qué estamos hablando?
El sistema se autoorganiza
Esta es una ciencia de cómo, cuando tienes grandes números de partes componentes, salta algo que jamás habrías podido predecir, y salta algo donde, cuando miras cómo ocurrió, las piezas de lo que salta se juntan ellas solas. El sistema se autoorganiza. Ese es el movimiento clave de la emergencia: que tienes suficientes partes componentes y de ahí emerge algo que se autoorganiza en algo complicado y ornamentado y adaptativo y toda esa gran cosa que jamás, jamás habrías podido predecir mirando los ladrillos de debajo.
Porque, como dice la otra regla, los ladrillos son idiotas y simplistas y todo eso. Aquí está la manera... aquí está la versión que resume todo sobre la emergencia. Coges una hormiga y la pones en una mesa, y va de aquí para allá sin ningún sentido. Aleatorio total. Pones dos hormigas, pones 10 hormigas, y todas van de aquí para allá al azar.
Pones cien hormigas y, no sé, empiezan a, encuentran una miga de pan y hacen una fila hacia ella o algo así. Pones 10.000 hormigas juntas y forman la sociedad que hace una arquitectura asombrosa y nidos, túneles de hormigas y cosas que están ventiladas, y cultivan setas bajo tierra, y tienen distintos sistemas de castas y esta sociedad increíblemente complicada.
Y la cosa entera es que cada hormiga sigue siendo igual de incoherente y simplista cuando la pones sola. No se ha vuelto nada más lista por haber 10.000. Pero cuando hay 10.000, emerge algo, porque más es diferente. Aparecen cualidades, aparece la autoorganización en una sociedad de hormigas. Ese es el ejemplo perfecto.
La siguiente característica de los sistemas emergentes es que, una vez que algo ha emergido en este nivel macro, la única manera de describirlo es en el nivel macro. No puedes averiguar qué iba a ser simplemente describiendo las partes componentes, como dijo... como lo formuló una vez el biólogo del desarrollo Paul Weiss en el contexto del desarrollo del cerebro: puedes empezar con las partes componentes simples.
Puedes empezar conociendo las reglas, pero nunca obtienes un itinerario. Nunca te dice cómo va a ser al final del camino, porque el camino se está construyendo mientras viajas por él. Porque el camino se está construyendo de una manera que es función de cómo viajas por él.
La humedad de una sola molécula
Y por tanto hay propiedades emergentes en este nivel autoorganizado que solo se pueden describir, solo se pueden entender, en el nivel emergente. Aquí está el otro tópico del campo. Aquí un gran ejemplo. Una sola molécula de agua, H2O, una sola molécula de agua no puede poseer la propiedad de la humedad. Una molécula de agua no puede estar mojada.
La humedad es una propiedad emergente de muchísimas, muchísimas moléculas de agua. Y la clave es que el agua no empieza de pronto a sentirse húmeda porque, mágicamente, al juntar suficientes, de repente en vez de ser H2O pase a ser O2, y de ahí venga la humedad.
No: nada en el hecho de que haya dos hidrógenos y un oxígeno puede predecir a qué va a saber la humedad. Y nada en ello va a predecir que una cascada se vea básicamente siempre igual, a pesar de que ninguna molécula de agua de las que caen por el borde va a volver a hacer eso jamás.
Sin nadie al mando
Este sistema es robusto. Es resistente. Se autocorrige. Y todo eso está pasando en un nivel en el que las hormigas siguen siendo tan tontas como antes, y el agua sigue siendo H2O. Y propiedades resultantes que solo se pueden entender en este nivel emergente. Ahora, lo que veremos, para mi gusto, lo más interesante de los sistemas emergentes, no es solo que no haya itinerario, y no solo que las partes componentes no se vuelvan más listas ni nada de eso, sino que verás una y otra vez autoorganización en cosas complejas, adaptativas, lo que sea, sin nadie al mando, sin nadie en posición de mirar los distintos trozos de conocimiento disponibles y decidir cuál es la mejor opción que tomar.
Simplemente emerge por su cuenta. Y lo que vamos a ver es cómo se ve eso en contexto etológico, en contexto neurobiológico, todo eso. Y acechando bajo la superficie, implícito en todo eso, está que si no hay quien decida, y no hace falta dar un itinerario al principio porque el camino ni siquiera existe todavía, no hay plano, solo hay unas instrucciones iniciales sencillas, pero no hay plano.
Y como digo aquí por primera vez, una sutileza notable. Lo que eso implica también es que, si no hay planos, no necesitas postular a un hacedor de planos, pero volveremos a eso. Vale, ¿y cómo es esta clase de cosas emergentes y robustas?
Paul Green era biólogo del desarrollo de plantas, y era como el tío más raro de la Tierra. Teníamos, o sea, nuestro retiro anual del claustro, que es una especie de feria de mostrar y contar: «Lo que hice este verano.» Cada persona se levanta y habla 10 minutos y dice: «Bueno, este año pasado mi laboratorio clonó esto, secuenciamos aquello, hicimos todo eso, y aquí está la estructura de este gen, y aquí cuántos exones e intrones tiene.» Y recorres eso, y todo el mundo, ya sabes, aplaude un poquito, y luego vas a por un bollo o algo.
¿Cuántas reglas necesita una hoja?
Y oyes a la siguiente persona, y luego Paul Green se levantaba y decía algo como: «Bueno, el año pasado mi grupo estaba pensando cuántas reglas necesita una hoja de monocotiledónea para parecer una hoja de monocotiledónea?
Y creemos que solo necesita tres reglas.» Y entonces se sentaba y todo el mundo decía: «¿Pero qué...?» Y o sea, aquello era sencillamente tan raro. ¿Qué? No había clonado nada. No había secuenciado nada. No había medido la afinidad de unión de alguna hormona vegetal por su receptor. ¿Cuántas reglas hacen falta para que este tipo de hoja tenga este aspecto?
Y creemos que solo hay tres reglas. Eso era lo que hacía. Así que daba una conferencia maravillosa de la que yo no entendía absolutamente nada de las matemáticas. Hablaba de algún tipo de presión física, de cosas de física. Supón que tienes un disco, un disco, y Paul Green te llevaba entonces a: «Así que hagamos un experimento con él.
Vale... ¿y si calentamos el sistema?» Y te llevaba por estas ecuaciones increíblemente complicadas que me perdían al instante, sobre cómo el calor repartido por este material frente a lo largo del borde funcionaría de manera distinta. Y luego hacía esta increíble demostración de fuerza matemática y mostraba al final que la única solución matemática es algo que no se parece en nada a esto.
La única solución matemática es que esta cosa alcanza su conformación de mínima energía. Forma una silla de montar doble. Estupendo. Quién sabe de dónde salían las matemáticas, pero vale, así se resuelve eso. Y entonces nos enseñaba una patata frita. Y la única solución matemática para cómo va a lidiar este corte de patata con este desafío térmico es abombarse en forma de silla de montar doble.
Y luego la metes en tu lata de Pringles y encaja justo ahí. Y uala, eso es totalmente guay. En esencia, ¿cómo demonios sabía ese corte de patata cómo formar una silla de montar doble?
¿Eran instrucciones genéticas? No, o sea, no hay genes y es un corte de patata y simplemente pasa porque así es como funciona la física de la cosa. Y la única manera en que podrías calentar un corte de patata y obtener un resultado: lo único a lo que se parecerá al final es a una silla de montar doble, como una patata frita.
Sin plano y sin autoridad central
¿Cómo cableas las cosas de la manera más eficiente posible sin un plano y sin una autoridad central? Así que, primer ejemplo de esto: ¿cómo averiguan las abejas cuándo toca trasladar su colonia, su colmena, a un sitio nuevo?
¿Cómo lo hacen? Así. Aquí está la colmena, y envías a dos exploradoras, y una de ellas encuentra un sitio posible a esta distancia, y la otra encuentra un sitio posible al doble de distancia. ¿Qué hacen en ese momento?
Hacen nuestra etología, Karl von Frisch. Vuelven a la colmena y se ponen a bailar. Y bailan dónde está esta fuente: cuánto tienes que ir, ve en esta dirección, ve con este ángulo. Es este maravilloso... de un posible hogar nuevo, y este es un posible igual de maravilloso. Y fíjate en algo que pasa aquí.
La manera en que funciona ahora es que dependemos de interacciones aleatorias, o sea: esta abeja vuelve y se pone a bailar por ahí alrededor de la colmena, y todas las demás abejas de dentro andan por allí en un frenesí aleatorio. Y la regla es que, si se topan con esta abeja que baila, descifran lo que está diciendo y salen volando al mismo sitio.
Por tanto, movimiento aleatorio de la primera generación de exploradoras, y la segunda generación, que se topa al azar con lo que estaba haciendo esta exploradora concreta y queda reclutada para dar el mismo mensaje que esta exploradora. Así que vamos a representarlo. Como este está al doble de distancia de la colmena que este otro, tarda el doble en hacer el salir, inspeccionar el sitio y volver a difundirlo que este.
Así que repasemos distintos... en el momento A, este individuo ya ha vuelto a la colmena. Esta todavía no ha vuelto. Momento B. Como resultado del baile de esta, ya ha reclutado a otra abeja. Esta acaba de volver y ha empezado a bailar. En este punto ya vamos por cuatro abejas aquí, porque esta tarda el doble en llegar.
Todavía no ha reclutado a la segunda. Y así sucesivamente. Y lo que pronto obtienes es que el 99 % de la colmena se decide por la solución correcta, que es ir al sitio que está más cerca. Y nadie tenía conocimiento de ninguno de esos dos sitios. Todo lo que pasó es por este patrón de aquí, por estas interacciones: emergió la solución óptima y toda la colmena levanta el vuelo y se marcha.
Bailar más tiempo por una fuente mejor
Siguiente versión de esto, de cómo encuentran las abejas un buen sitio nuevo. Y esta vez las dos fuentes potenciales están a la misma distancia, pero esta es el doble de buena que esta otra. Y tiene que haber un medio de enlazar eso, del modo siguiente. Cuanto mejor es la fuente que has encontrado, más alto difundes esa información.
¿Qué queremos decir en el caso de las abejas? Las abejas vuelven de encontrar algo, entran y bailan, y paran al cabo de un rato porque se cansan o se aburren. Y el trato es que, si este sitio es el doble de bueno, por el criterio que sea, que este otro, esta abeja, cuando vuelve, va a bailar el doble de tiempo.
Y como resultado de eso, hay el doble de probabilidad de que alguna otra abeja al azar se tope con ella y quede reclutada. Y así, ahora hay dos que bailan más tiempo y tienen mucha más probabilidad de... simplemente porque difunden la señal durante más tiempo. Reclutan a más individuos, que reclutan a más individuos, y antes de que te des cuenta has resuelto exactamente lo mismo, y la colonia entera se va al sitio preferible.
Nadie tenía conocimiento de ninguno de esos dos sitios. No había plano. No había quien decidiera. No había plan maestro. No había un itinerario previo que dijera, ya sabes: «Vas a acabar aquí al final.» Simplemente emergió en función de: difundes una señal mejor más alto, más tiempo, más intensamente, lo que sea.
Y cuando tienes suficientes partes componentes funcionando así, vas a emerger. Te vas a autoorganizar con una solución óptima. Así que así lo hacen las abejas. Hormigas, hormigas, vamos a mirar ahora las hormigas. Las hormigas tienen un problema parecido, que es que quieren que la vida les sea fácil y exitosa y dejar copias de sus genes.
Así que tienes hormigas, y supón que hay seis sitios distintos fuera de su hogar de hormigas donde hay una fuente de comida. Hay seis sitios potenciales de forrajeo distintos. Y las exploradoras... fíjate otra vez en esta noción... la primera generación de exploradoras, las exploradoras salen ahí fuera y exploran estos distintos sitios de forrajeo. Y lo que quieren hacer no es solo encontrar los buenos, sino encontrar el camino más corto que conecte todos ellos, porque las hormigas tienen patitas.
De hecho hay entomólogos que estudian, o sea, cuánta energía le cuesta a una hormiga caminar tantas pulgadas en el Amazonas frente al desierto del Gobi. Y tienes seis sitios posibles de forrajeo distintos. Y hay un chorrocientos de caminos distintos que una hormiga puede tomar para visitar cada uno de ellos y ver qué hay disponible hoy.
Y esa hormiguita que puede no quiere desperdiciar energía volviendo a ningún sitio más de una vez. Y hay un número enorme de maneras. En este caso, cinco factorial, que es 120. Hay 120 maneras distintas, rutas que una hormiga podría tomar para visitar cada sitio sin repetir. Son 120. Pues llegamos a 10 sitios de forrajeo y ya vamos por, no sé, 100 millones.
El problema del viajante
Llegamos a 15 y estamos en 100.000 millones o algo así. Tenemos lo que se llama una versión del «problema del viajante», que lleva siglos atormentando a los matemáticos, y que es: aquí hay un número de sitios posibles y quieres ir a cada uno solo una vez, pero ir a todos y cada uno de ellos.
¿Cómo averiguas el camino más corto para hacer eso? Y siglos después del problema del viajante, no hay una solución estándar para él. Y una solución es ir por fuerza bruta. Consigues un ordenador que simplemente escupe cada una de las 100.000 millones de posibilidades y te dice: «Ah, esta es la mejor.» No es una solución sutil.
La inteligencia de enjambre
Si quieres acercarte a la solución óptima de este problema del viajante, lo que haces es pedirles a las hormigas que te lo resuelvan. Y lo hacen de una manera que hoy se conoce como «inteligencia de enjambre», con hormigas virtuales. Muchas empresas lo usan ahora al programar, intentando resolver patrones de optimización como este.
La regla es esta. Tienes una primera generación, una primera generación de hormigas que salen y simplemente exploran todos estos sitios distintos. Y el trato es que, conforme van de un sitio a otro, dejan un rastro de feromona. Tienen, tienen en el culo una glándula de feromona y la inclinan y la arrastran por el suelo ahí.
Así que van dejando un rastro de todos los sitios por los que han pasado. Esta es tu generación pionera. Ahora necesitamos algo equivalente a: «Si es una fuente mejor, bailas más tiempo», una manera de que una buena ruta se difunda más alto que una ruta peor. ¿Y cómo se hace eso?
Cuanto más corto es el camino entre dos puntos, más grueso es el rastro de feromona que deja la hormiga. Lo cual tiene todo el sentido. Si vas dejando un rastro de feromona yendo de aquí a aquí frente a de aquí a aquí, como esto es la mitad de distancia, puedes soltar el doble de feromonas con cada paso, va a ser el doble de grueso que este otro.
Las rutas mejores, más cortas, tienen rastros de feromona más gruesos. Y ahora esto tiene que traducirse en un elemento temporal. Igual que aquí, cuanto más grueso es el rastro de feromona, más tarda en evaporarse. Así que ahora sueltas a tu segunda generación de hormigas. Y estas son las que vagan al azar. Igual que las abejas se topan al azar con una de las bailarinas y quedan reclutadas.
Ahora sueltas un chorrocientos de hormigas por toda esta zona. Y su única regla es que, si te topas con un rastro de feromona, te unes a él y le añades tus feromonas. Y lo que hemos visto ahora es que, conforme pasa el tiempo, es más probable que te topes con una de las rutas mejores, más cortas, que con las largas, porque las largas han ido evaporándose, porque tienen menos feromona por unidad de suelo.
Te topas con él, y este es uno que ha durado más, y como resultado lo haces durar aún más añadiéndole tus feromonas. Mucho más probable que otra cualquiera. Y si haces suficientes rondas de esto, emerge la solución óptima o, como se ha visto con las hormigas, típicamente el 99 % del camino hacia la solución óptima.
Resuelven aquí el problema del viajante con estas reglas sencillas. Una generación pionera que difunde lo que encuentra en función de lo buena que es la noticia. Una población que vaga al azar y que está montada en un esquema de «el rico se hace más rico» para reforzar las rutas mejores y sumar su voz a ellas. Y con esto, las hormigas llegan a ello en una fracción del tiempo que tardaría tu ordenador.
Y una vez más, no hay plano y no hay hacedor de planos. Simplemente emerge. Y esto es de nuevo suficientemente el caso como para que, o sea, las compañías de telecomunicaciones que intentan cablear un montón de torres de radio y... tienen que tener cables. Quieren minimizar la cantidad de dinero que tienen que gastar en cables.
¿Cuál es la manera más óptima de hacer esto? Y ejecutan hormigas virtuales haciendo inteligencia de enjambre virtual para que se lo resuelvan. Así que acabamos de ver una primera pasada de cómo es la emergencia. Lo que retomaremos el viernes es cómo se despliega luego lo mismo, exactamente las mismas reglas, cuando los mohos mucilaginosos aprenden a resolver laberintos.
El cerebro hace lo mismo
Y luego, lo más notable, veremos cómo el cerebro hace exactamente lo mismo. Generación pionera que difunde más alto los mejores hallazgos, vagabundos aleatorios que refuerzan los buenos mensajes, así se cablea tu córtex. Y esto es solo el primer paso para ver que son las mismas reglas. Vale, y ahora que los animales están aullando, se acabó la clase, así que retomaremos esto el viernes.
18 · Emergencia (2)
Más es distinto: los cuatro motivos
La emergencia se define por lo que no necesita: ni plano, ni mando centralizado, ni un componente que sepa algo de las alternativas. Cuatro motivos que el curso usará hasta el final —la exploradora, la bifurcación fractal, la atracción y la repulsión, la ley de potencias— y una lección final: lo «normal» es un promedio.
Lectura de 1 minuto
- Con suficientes piezas simples y unas pocas reglas locales emerge un nivel nuevo, con propiedades que solo se describen ahí: nada de una molécula de agua explica qué es estar mojado.
- Primer motivo: una generación exploradora difunde con más fuerza cuanto mejor es lo que ha encontrado, y el reclutamiento hace que el rico se haga más rico.
- Hormigas y mohos mucilaginosos resuelven el problema del viajante y los laberintos con esa misma regla; el moho de Tokio llegó a una red comparable a la del metro real.
- En la corteza fetal las células gliales radiales hacen de exploradoras: el camino más corto hasta la superficie segrega más molécula atrayente y recluta más neuronas.
- Segundo motivo: la geometría fractal, con patrones sin escala, permite estar en todas partes ocupando un espacio mínimo: el conjunto de Cantor, el copo de Koch y la esponja de Menger.
- La regla del árbol es una sola —crecer cuatro veces el diámetro y dividirse—, así que la vasculatura, el pulmón y las arborizaciones axónicas usan los mismos genes.
- Cambiar esa proporción cambia la estructura: nacer en altitud y respirar poco oxígeno deja un pulmón más frondoso, y eso conecta el ambiente con las diferencias individuales.
- Tercer motivo: atracción y repulsión. Un atrayente junta a las neuronas, la falta de oxígeno en el centro frena el grupo y el cambio a repulsión deja núcleos y proyecciones largas.
- Cuarto motivo: la ley de potencias, que en su versión popular es la regla del 80/20, y que en la corteza reparte el trabajo entre grupos locales robustos y unas pocas proyecciones largas que permiten innovar.
- Y el cierre: lo normal es un promedio estadístico, y el cerebro humano es un caso de «más es distinto», no de piezas especiales.
Primer motivo: la exploradora y el rico
Una generación exploradora sale, encuentra algo bueno y lo difunde con más fuerza cuanto mejor es, y los vagabundos que se suman refuerzan la señal. Los mohos mucilaginosos resuelven laberintos así, y su red acabó pareciéndose a la del metro de Tokio. En la corteza fetal, el camino más corto a la superficie recluta más neuronas.
Segundo motivo: bifurcar sin escala
Repetir una operación al infinito da objetos imposibles: el conjunto de Cantor, cuyos puntos no ocupan espacio; el copo de Koch, de perímetro infinito en área finita; la esponja de Menger, de volumen nulo y superficie infinita. La biología lo necesita: no hay célula a más de dos o tres de un capilar y la red suma decenas de miles de kilómetros, y codificar cada bifurcación exigiría 50.000 genes y solo tenemos unos 20.000. La salida es una regla sin escala: crecer cuatro veces el diámetro y dividirse, igual en vasculatura, pulmón y axones. Retocar la proporción cambia la forma; de ahí la coliflor romanesca, cuyo patrón la clase atribuye a dos genes, cuando lo documentado es su red de genes florales.
De capilares en cada persona, con el sistema circulatorio ocupando solo el 3 % del peso corporal.
Tercer motivo: atracción y repulsión
Un montón de neuronas bebés forma núcleos y avenidas sin nadie que planifique. Cada una segrega un atrayente y el azar junta parejas que crecen; el freno es que las del centro se quedan sin oxígeno y lo neutralizan, lo que detiene el grupo y dispara proyecciones hacia las vecinas. Cuando el cableado local basta, el grupo libera atrayente hacia fuera y salen las conexiones largas.
Cuarto motivo: la ley de potencias
Casi todas las interacciones son locales y unas pocas van lejos, cada vez más raras: la ley de potencias, o distribución de Pareto, y su versión de bolsillo, la regla del 80/20, que en los primeros meses de la COVID repitió el patrón. En la corteza casi todas las proyecciones son locales y las más raras cruzan al otro hemisferio por el cuerpo calloso. Los grupos locales resuelven lo conocido; las proyecciones largas conectan con especialistas distintos.
Neuronas del cerebro humano frente a las de la mosca de la fruta, según las cifras que da la clase. La pieza suelta —la neurona— es casi la misma en las dos.
Cuándo la corteza se inclina hacia lo local
Dos poblaciones muestran ese sesgo. En los hombres, según la clase el cuerpo calloso es más fino, y deduce islas de pericia; la revisión de esos estudios no encuentra diferencia sexual fiable, y el trabajo que la originó salió de catorce cerebros. En el espectro autista, el sesgo local se presenta como resultado cuando es la hipótesis dominante: los estudios posteriores encuentran de todo.
Organoides, una uña y lo que nos hace humanos
Neuronas bebés suspendidas en tres dimensiones se autoensamblan hasta parecerse a capas corticales fetales, y ya salen de ahí ondas cerebrales primitivas. Con ellos se prueba de todo: un gen neandertal, un músculo, una máquina. La uña muestra lo mismo: el crecimiento desparejo tras cortarle un borde sale de su mecánica. Y el argumento final: la neurona de una mosca y la nuestra son casi la misma pieza, y lo poco que diferencia al cerebro humano va de cuántas rondas de división aguantan los progenitores, como muestra el decepcionante genoma del chimpancé.
Las lecciones
Hacen falta exploradores y azar. Con suficientes iteraciones gana la regla más simple: el ojo por ojo. Y lo normal es un emergente estadístico: nadie está en el centro de la campana.
Quiénes salen en este tema
El marco de la emergencia
- Thomas Henry Huxley — Biólogo británico (1825-1895), el «bulldog de Darwin». La frase que la clase cita como elogio de los sistemas emergentes —que simulan inteligencia «como una abeja simula a un matemático»— viene de su ensayo de 1874 sobre la hipótesis de que los animales son autómatas, donde el argumento va en la dirección contraria: que esa inteligencia aparente no es inteligencia. El ensayo
- Philip W. Anderson — Físico estadounidense (1923-2020), Nobel de Física en 1977 y autor del artículo «More is different» (Science, 1972), que es el eslogan de toda la clase. Identificación candidata: él nunca lo nombra. El artículo
Los fractales
- Niels Fabian Helge von Koch — Matemático sueco (1870-1924), que describió en 1904 la curva que lleva su nombre y que la clase dibuja como el copo de perímetro infinito en área finita. La clase dice solo «el matemático que lo descubrió». Wikipedia
- Georg Cantor — Matemático alemán (1845-1918), que describió en 1883 el conjunto cuyos puntos no ocupan espacio y que la clase presenta como «otro matemático del siglo pasado». Wikipedia
- Karl Menger — Matemático austro-estadounidense (1902-1985), que describió en 1926, mientras trabajaba en teoría de la dimensión, la esponja tridimensional de volumen mínimo y superficie infinita. MathWorld
El cableado del cerebro
- Peter Robin Hiesinger — Neurobiólogo del desarrollo, especializado en cómo se cablea el cerebro de la mosca de la fruta. Su programa es el que la clase describe: contar cuántas reglas —no cuántas moléculas— hacen falta para generar un árbol axónico. La clase lo sitúa en Heidelberg; su grupo está en la Freie Universität Berlin. Su grupo
- Paul Barnett Green — Biólogo vegetal estadounidense (1931-1998), en Stanford, que estudió la física del crecimiento de las plantas: es el modelo de científico que la clase usa como ejemplo de quien pregunta cuántas reglas necesita una hoja, y el de la lámina que solo puede combarse en silla de montar. Memorial
- Marc Tessier-Lavigne — Neurocientífico que descubrió la netrina, la primera molécula atrayente de axones, y después las señales repulsivas Slit y sus receptores Robo. Es el trabajo molecular real que hay detrás del tercer motivo de la clase. Perfil
- Atsushi Tero y Toshiyuki Nakagaki — Físicos y fisiólogos del moho mucilaginoso. Nakagaki firmó el trabajo del laberinto de 2000 y el de la red de Tokio de 2010, del que Tero es primer autor. La clase los sitúa en la Universidad de Tokio; sus instituciones son Hokkaido, Oxford y Hiroshima. El artículo
La distribución que lleva su nombre
- Vilfredo Pareto — Ingeniero, economista y sociólogo italiano (1848-1923). De su Curso de economía política (1896-1897) sale la observación de que una minoría poseía la mayor parte de la tierra del reino de Italia, y con ella la regla del 80/20 que la clase llama así «con retintín». Identificación candidata: el epónimo está en el aula, la persona no. Wikipedia
Y una correspondencia sin nombre
- Un ingeniero jubilado de Bombay — Sin nombre y sin institución. Es el autor de la observación de la uña que la clase cuenta como la cosa emergente más asombrosa que ha visto: cortó una uña del pie, la fotografió cada semana y le envió las imágenes. No hay publicación detrás, así que no se le atribuye ninguna. Sin fuente que enlazar.
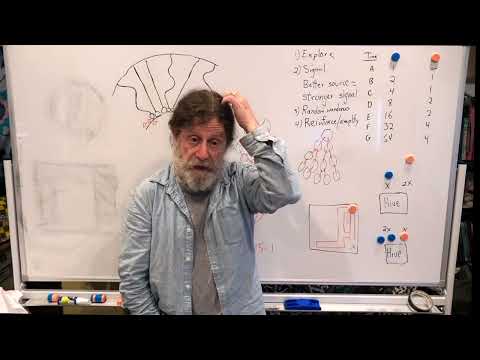
Leer la clase entera, palabra por palabra
Transcripción automática del vídeo, sin corregir: solo la hemos limpiado de ruido del subtítulo, maquetado en párrafos y puesto los títulos que él mismo va anunciando. Los estudios y las citas se dejan en su inglés original y se pueden pulsar.
Traducción al castellano automática: si un matiz importa, comprueba el original inglés.
Retomamos: la emergencia y sus motivos
We pick up on emergence. Basic idea again is, you start in a world of lots and lots of idiotically simplistic little component parts who only have a few rules for interacting with each other. And in a wonderful demonstration why "more is different," you put enough of them together and very often something will emerge.
A self-assembling level of organization will emerge above that that will do something very complicated and very adaptive, and critically, will have features that can only be described at the emergent level. There is nothing about a water molecule that will ever teach you what wetness feels like. So, emerging at that level and most importantly, amid that adaptiveness, without a blueprint, without a centralized command, without any element there that has information about two different possible sources, two different sites, all of it simply emerging.
Primer motivo: la exploradora, el reclutamiento y el «rico se hace más rico»
And we saw, looking at our first example, this motif in a lot of different realm domains of, you've got an explorer scout generation that goes out and gets information about something wonderful that everyone wants to know about and comes back. And the critical point being, the better the news, the more intensely the signal is given.
And then a second generation of random wanderers who bump into recruitment signals about what has been found. And because the better source is recruiting more loudly or longer, they're more likely to get recruited to that, which reinforces it, reinforces "rich gets richer," and we have an exponential increase. We saw one version starting with bees.
This potential new site is half the distance of that one, which means this one will be getting there more times and accruing more followers with an exponential increase. Same sort of logic here, where one site is twice as good as the other, and this individual comes back and broadcasts it louder in the form of dancing twice as long, which makes it that much more likely that one of the random wanderers in the hive will bump into them and join in and come back and be dancing twice as long, and the same exponential increase.
Hormigas y mohos: el viajante y el laberinto
We then saw conceptually the exact same thing in ants: how ants go about solving the traveling salesman problem with a bunch of foraging sites. They do not want to have unnecessary extra pathways to walk to get to each one of these sites, ideally only once. And how do they do that?
An explorer generation that goes out and leaves a pheromone trail between any two of these. And critically, the shorter the pathway, the thicker the pheromone trail. Pheromones evaporate over time. In other words, the shorter the pathway, just like here, the longer the pheromone signal is going to persist. And then we start with our random wanderer generation that bumps into any one of these.
And the rule is, if you bump into a pheromone path, you join it and you add to it. And thus, what emerges is as the shorter paths persist longer, out will come something close to the optimal solution. Totally amazing in that regard. More examples. More examples. The next one involving something that is very rarely mentioned in neurobiology: Slime molds.
Slime molds. I had to look them up. They're like amoeba, individual amoeboid cells. I don't know what an individual amoeboid eats, but at times they all have to join together and form this big social colony. This whole thing where it's a gazillion of these amoeboid cells in there which form a slime mold colony, where they're all held together by bridges between them, and this thing can ooze and ooze around and go and find food sources.
So, you will see some slime mold oozing around. And what people figured out was, slime molds are smart. They can solve puzzles. They can solve mazes as follows: You put in a dollop of slime mold. Here you've got a maze. So, you plop some of it down there. And here you have something wonderful: not just this, magical, but apparently oat flakes.
Every study feeds the slime molds oat flakes. So, here's some irresistible oat flakes. And the slime mold begins to ooze out in all directions. And eventually it fills up all of these pathways. And then you go out for lunch, some oat flakes, and you come back afterward and you will see there's only a single straight line of slime mold here.
How did they do it? Note that in solving this maze, the slime mold avoids the dead end and it avoids the less efficient route to the same food source. How does this work? With a very simple rule, and it's straight out of this again: we've got randomly spreading out, and now we need to see what the slime mold signal is.
As soon as the slime mold bumps into a food source, the cells that are at the front of the slime mold start pulling towards it. Makes sense. Oat flakes pulling ahead. And it takes a form where all of these linkages, these protein linkages, begin to get parallel, which generates a very strong force of pulling.
And thus, the better the food source, the more cells immediately jump into this pattern and start pulling. And now recruitment reinforces. The stronger it pulls, the more of the next cells in line get pulled into this. And the more and the more, and what you see is over the next period of time, this gets retracted down into this.
This gets retracted not because there is any amoeba in there that is saying, 'Whoa, this is such a better path,' and that no cell has information about anything more than the path that they have taken, but simply because of this emergent thing: you start pulling towards the food. The better the food, the harder you pull.
The harder you pull, the more you recruit more cells to reinforce to amplify that same pathway, which gets richer. And before you know it, the slime mold has solved the maze. This gave rise to one of the all-time great studies in Nature or Science (I can never remember) some years ago. And it involves slime mold.
El moho que dibuja la red de metro de Tokio
And what went on in there was, you were shown there was sort of this table with an oddly shaped barrier around it and all sorts of little pockets of oat flakes, little dollops of oat flakes. And the researchers plopped down some slime mold in the middle of this. And what they did was go away for a while and they came back and what they saw was something resembling an ant traveling salesman thing.
There was a slime mold pathway connecting every single oat flake to every single oat flake. That's great. But then the slime molds did the same efficiency thing as the ants. You go away for a longer time and you come back and there is a highly optimized network of connections. Not every single oat flake cluster connecting to every single other one, but instead a fairly optimal pathway.
Okay, that's very cool. And then what leaves the crowd cheering, begging for more, it is revealed that these researchers at the University of Tokyo (I believe this sort of barrier thing is the outline of Tokyo along the ocean) and each oat flake cluster corresponded to a train station in the Tokyo subway system.
And what you saw was, leave the slime mold in there for a while and it comes up with something statistically indistinguishable from the optimized route of different subway lines connecting different stations to each other. Oh my god, this is totally amazing. This is totally amazing. You can bet. All sorts of urban planners sat around figuring out what's the most efficient, what's the way to minimize the amount of tunnel we have to build to put this whole system together.
And the slime molds solve that with once again the same thing: an explorer generation that spreads out everywhere. The better the resource, the more of a recruitment signal. And then random wanderers get pulled into this. "Rich get richer," and you solve it. So, bees and ants and slime molds, and neurons, which is what all of this was heading us to.
La corteza fetal: las gliales radiales como exploradoras
So, we look here at the cortex, the primate cortex. It is magnificent. What you see is, it forms a whole bunch of layers which have not formed yet in this diagram. This is the fetal cortex. And how do you get the structured layers in the cortex?
How does it develop? Not just develop, but in the most optimal possible way. What you see is the same exact thing. There is an initial explorer generation. These things called radial glial cells. And what they do is, they grow a projection from the core center of what's going to be the cortex to the surface.
And what you see is, some of those pathways to the surface are more efficient than others, are straight lines as opposed to these ones meandering all over the place. Some of them more efficiently will connect this region all the way up to the surface there. So, we've got more efficient projections from this first generation, less efficient ones.
So, how do we get the better pathways to give a stronger signal? Very simple. The shorter the path from here to there, the more of an attractant molecule you secrete, the more powerfully you then recruit your next generation, which are baby neurons, which are pulled in by this attractant. The more efficient the pathway to the surface, the more neurons are pulled to it.
And then they proceed to climb up here and get up and eventually get to the top and give the same attractant signal which gets more neurons until eventually you've got these layers here. And what happens at that point is, some very cool cell biology gets rid of these unuseful ones. And multiply this a gazillion times, and you see what are called cortical mini-columns where they are functionally related.
How do you pull that off? With the same exact motif: the first explorers that have a way of saying, broadcasting if they've got a more efficient solution to whatever it is, loudly. And that recruits the random wanderer generation so that better sources are more likely for them to join because it's stronger signal.
¿Es esto inteligencia? La abeja que simula a un matemático
And by joining, they give off even more of a recruitment signal. And you get this, and it's reasonable to say, are we looking at intelligence? Are we seeing intelligence: bee intelligence, slime mold intelligence, neuronal intelligence?
Not from the whole brain being intelligent, but on this level, should this begin to count as intelligence, as flexible intelligence, when you just see these simple rules playing out? And that, I think, in some ways is a matter of taste. But there is a wonderful quote. Thomas Huxley, famously Darwin's bulldog, who in the 1870s wrote a sentence that I think is just wonderful in terms of how he was getting these principles like a century before any of the building pieces of this were understood.
Inteligencia de enjambre, robots y el fallo de un supuesto
He wrote that when you see biological systems doing amazing stuff, they simulate intelligence, like a bee simulates a mathematician. I love that quote. That's a great quote. And what you see is this pathway. All of these examples of what are now called swarm intelligence. And all sorts of roboticists study this and program their robots in problem-solving sort of ways that follow this.
As I mentioned, telecommunications companies that want to minimize the amount of cable they have to spend to hook things up, run virtual ants and come up with optimal pathways that way. And in the cortex, what you see is you wire up the cortex appropriately while spending the least amount of money on these scaffoldings because it's the straighter, better projections.
Okay, so this is totally wonderful. And this is seeing this theme: lots and lots of participants. One bee can't solve this. A gazillion ants are needed to solve that. A gazillion slime mold cells join all of that. Lots of very simple participants that have a simple rule, which is: if I bump into a dancing bee, I go see where it's broadcasting.
If I bump into a pheromone trail, I join it and add to it. If I bump into one of these things, because I'm being so much more attracted to these than the less optimal ones, I join in, and "rich get richer," and out emerges a beehive colony that could find a new site without any bee knowing information about the two possible sites, without any centralized executive decision-making, and without a blueprint at the beginning, and they come up with the optimal solution.
There's some weird circumstances where you don't come up with the optimal solution, and both people who study this stuff have looked into some of those, and roboticists have often stumbled into those, where they get bitten in the rear because they forget one little assumption, and the solution winds up being wildly unuseful. Okay, here's an example of it.
This was a study where people, roboticists, were trying to program this Roomba-type thing that was moving around inside this room with all sorts of these obstacles. And what it was supposed to do, it had a bumper on the front, and every time it bumped into something, it would recoil from it and learn to try to avoid that.
And what you would wind up seeing, because it was programmed to avoid getting your bumper bumped, is it's now supposed to figure out some great optimal way to get through. What did it figure out instead?
It just goes backwards and bumps into everything because it had no bumper there. "Oh, we forgot to tell it it can't go backwards." Examples like that. But in most of these cases, you get the ideal solution, or very, very close to it. And you get it without a blueprint, and without a blueprint maker, and without a centralized executive decision maker, and all of that.
Segundo motivo: geometría fractal, patrones sin escala
And it emerges. It's wonderful. Okay, our next motif: another way in which simple emergent rules can do incredible stuff. Okay, and here is where we get infinite things happening inside finite spaces; things which are impossible spatially in normal, traditional geometry, but can be solved with what is now called fractal geometry, patterns that are scale-free.
And you will see that this is done in all sorts of biological systems, including our brains, to come up with really, really optimal solutions to things and once again, using some of the exact same motifs. Okay. So, notice here, we have this straight line. We've got this line. And what does that number mean?
It is 100 units long. And what you do is, you swoop in and you take out the middle third of it. So now there are two lines with a total distance of 66, 66.6. Let's ignore that. Then you go in and iterate. You do the same thing again. You take out the middle third of each of these.
You're up to four of these that are 44 thingies long. Do it again. 28, 8, 16, all of that. And 'cause you got nothing else to do, do it forever. Do it to infinity. And you come up with something that is absolutely impossible. Okay. Here we see, as we go through each new round, the number of lines is increasing exponentially.
And we'll just keep doing that. And as we go through these rounds, the total length, the amount of space occupied by the lines, is crashing down. So, take this out to infinity and you get something that is absolutely impossible, which you get a pattern of dots that are infinitely present, infinitely frequent, while taking up infinitely little space.
El copo de nieve de Koch y la esponja de Menger
This—it's everywhere, but it takes up no space. This seems impossible, but this is what you get when you iterate, when you do this over and over again, and you take this out to infinity. Another version of this. Now what we see is, we start with this triangle. This is called a Koch snowflake—mathematician who figured this out.
Oh, this is called a Cantor set—another mathematician last century. And here you have a triangle, and note the similar rule: take out the middle third of each of these and make a smaller triangle out of it. So, we go from three points to six points, and then the middle third of each of these, and do that again.
And then you do it again, and you can bet I spent hours drawing this thing. And what you see is, with each one of these, the volume of this is increasing. It is increasing but in a way that asymptotes quickly. Whereas the perimeter, the amount of space surrounding this, keeps getting bigger and bigger in an exponential sort of…
What have you got here? A two-dimensional version of this impossible thing. Here we have dots that are everywhere that are infinitely plentiful but take up an infinitely small amount of space. Here we have an object whose volume rises in a finite sort of way, but whose perimeter is going to get infinitely bigger, which seems impossible.
And then you get a third version of this, what's called a Menger sponge. And now you do this three-dimensionally. And you start off with a cube, and you take out the middle ninth. You could see the middle third here, the middle third in each of these dimensions. The same motif again: you take it out from this side of this cube and this side and this side.
And that's great. And then iterate again. Do the same thing for this matrix. Take out the middle third. Do that. Do that over and over and over. You're taking out holes here that go through the center and all the sides. And what do you do as you pass your years doing this to infinity?
You get something that geometrically is impossible. You get a structure that has an infinitely small amount of volume but an infinitely large amount of surface area. This is impossible. How can this work this way?
But what you see is just by doing this fractal thing, ignoring the scale but just doing an operation over and over and over again, you approach an infinity of something that's impossible—that's everywhere but takes up no space, that has a finite volume but an infinitely long perimeter. Something that takes up no space but has an infinitely large amount of surface area.
Infinito en espacio finito: el sistema circulatorio
So, these are all formally impossible until you do this fractal type of thing. So, where does this come in to explain the world around us of living things? All sorts of stuff in the biological world has a problem that begins to sound like trying to pack infinity into a finite space. What do I mean by that?
Here's something you see: The circulatory system in our bodies is totally amazing. There is no cell in your body that is more than two or three cells away from a capillary. Whoa, that is incredible. You got to have blood. There's a blood supply near every single cell. This is like miles and miles of like vasculature you're going to need.
But at the same time, the fact that everybody is within a couple of cells of a capillary, your circulatory system is only 3% of your body weight. You know, within the confines of reality, that you can't do stuff infinitely with like us and our bodies and stuff. What have we just seen?
A system that is pretty much everywhere. It is everywhere within a couple of cells and approaches taking up zero space. It is exactly this. It is exactly each one of these, which is this solution that was, in principle, 'Oh my god, if every cell in your body has to be nearby a capillary, you're going to devote like half of your body weight to a capillary system.' And instead, there's a different sort of solution, which is to bifurcate, to split, to split over and over with a tree branching pattern, to split, to bifurcate.
And with each one of these, there's that many more points, each one of which is that much smaller. And this is what your circulatory system does: it comes up with, (I quote, I have no idea who measures these sort of things, but I take it on faith value) you come up with 48,000 miles of capillaries inside each one of us.
Bifurcation: you do something very simple. You split, and then you have two things that are thinner than the original one, and you bifurcate again, again, and again, and again, and the exact same thing. And you wind up with a circulatory system that is approximating infinity everywhere while approximating a different infinity: taking up no space in your body.
Pulmones, árboles y árboles axónicos
And you see these bifurcating systems all over the place, this tree-like branching in the circulatory system, in the pulmonary system. Coming down to your lungs, you've got bifurcations branching like crazy so that the number of tips of alveoli, I think they are... I don't know, I don't remember, but your pulmonary system comes down your trachea and then splits and splits and splits until you have something approximating an infinite number of endings where you could do oxygen exchange, an infinite number of them close to, while taking up an infinitely small amount of space, fitting inside your lungs.
How do you do a bifurcation thing? Again, you can see this with trees. Trees branch by definition. Those are the ones who started the whole thing. And what does a tree wind up doing?
What does a tree want out of its life? It wants to have lots of leaves on the tips here because you get sunlight, you do photosynthesis there. And a branching pattern, over and over and over, iterating, bifurcating repeatedly, allows a tree to begin to approach infinity, which is having an infinitely complete cover of leaves here to do photosynthesis while spending a very finite amount of money on wood, on trunks, on branches, all of that.
And then, of course, what you see is the same thing in neurons. The same thing as we see the axon coming out of a neuron, and it splits and it bifurcates and it bifurcates and bifurcates, and it comes out to like 50,000 axon terminals. Or you're getting the same bifurcation thing going on at the dendritic end with dendritic branches.
The same thing, which is a neuron. Okay, it can't talk to an infinite number of other neurons, but it can talk to 50,000 of them, which is pretty damn impressive. It has an enormous capacity to talk to other component parts while taking up a very small finite amount of space, because you got 80 billion other neurons doing the same thing.
Por qué no hay un gen por bifurcación
How do you do it? With this repeated scale-free splitting, branching, all of that. And the other thing they solve when you think about it is, if this is a neuron's axon coming out of here, for example, how do you code for this?
And you've got one obvious solution which won't work. How do you code for it in this way? You've got a gene that says, right around here, split. And a different gene that says, right around here, split. And a different gene that says, right around here, split. And what you see is, if any neuron is talking to 50,000 other ones, that means you would need like 49,999 different genes to specify each specific bifurcation event.
And we don't have that many genes. We only have about 20,000 or so. And then you'd have to have as many for your capillary system and your pulmonary system. And totally impossible. You cannot code for this in a point-for-point way because you run out of things that can give instructions. There's not enough genes to do it.
You've got to come up with something which is scale-free, which is a fractal solution to it. You have to come up with a solution that pays no attention to the scale and instead has some internally consistent properties. Okay, what am I talking about here?
La regla del tubo: cuatro veces la anchura y dividir
Look at this magnificent drawing that I made here. What we have is the trunk. The trunk of a bifurcating system. It's blood vessels. It's pulmonary whatevers. It's a tree. It's a neuron. Whatever. And you see here, it does this, and then it branches, and then it's branching in three different colors. And it's great.
And you'll notice something that's consistent in here, which is, there seems to be a rule. The rule as follows: If this trunk, if this tube, if this lumen (jargon for it), if this tube is X units in diameter, the rule is, you grow four times that and then you split. And as a result of bifurcating, the diameter of each of these is 1/2 of X.
And you grow four times that, 2X, and then you split. And now this is 1/4 of an X across. And you grow 1X distance. And you just do this over and you have just come up with a rule, with an instruction which, number one, doesn't require 49,000 different versions of the rule, and more importantly, can be applied in a scale-free manner.
Whether we're talking about something this big or something that big or what, just have the same rule: have the length be four times the length of the width, and then you split. And that's… and what is totally amazing is, people are beginning to find the tiny handful of genes that code for bifurcation in axon branching and the pulmonary system and the circulatory.
And it's the same genes, it's the same molecules. You have evolved this 'when do I bifurcate?' rule with genes coding for proteins that carry this out in a scale-free way. When the circulatory system is developing, it's using some of the exact same 'when do I bifurcate?' rule genes, fractal genes. And what you have there is, it's being played out in neurons as well that are a gazillionth of size because this is one cell and this is zillions of cells.
And oh my god, it's totally elegant. You can get structures which approximate being impossible in traditional geometry but are perfect in a fractally geometric world. You've got circulatory systems that are everywhere and take up no space. You've got axonal trees that could talk to an infinitely large number of neurons. Okay, well, only 50,000, but without taking up too much space.
You got trees that can have vast amounts of leaf cover there without spending a fortune to grow all these massive numbers of big thick trunks. So, first off, you've just done this great, physiologically wonderful thing of being everywhere while taking up no space, versions of that. And you could come up with simple rules that do it in a scale-free way.
Ambiente, diferencias individuales y mutaciones fractales
Just use this rule and do it over and over and over whether you are having neurons or trees or vasculature or whatever. And this is a great way of coding for all of this. So, what goes into this?
What's happening here? First off, what you see is, obviously it's not always going to be the same exact ratio. For example, you may have a rule where, okay, when you're developing your pulmonary system, you grow four times the length. The length is four times the width, and then you split and use this rule.
But suppose you are growing up at high altitude with low oxygen levels. You need more tips of your pulmonary system to do more oxygen exchange. And what happens early in life? Maybe you get some sort of epigenetic effect on these genetic rules. So now the length should be 3.9 times the width, meaning you're going to have a few more bifurcations and thus a few more doublings of the number of tips there.
And we begin to see how environment can shift this. We could begin to see how individuals differ as to what this particular rule might be. And as a result of your genetic variant, you've got thicker axonal branches. You've got more neurons that you're talking to on the average versus somebody else with the… and we start to see where individual differences come in and where environmental regulation comes in.
And all you have to do is to subtly futz with some of these parameters and just play it out scale after scale after scale, and you get adaptive modification of these branching systems. Now what that has to raise is this really interesting notion of, well, if we can think of these as being fractal genes giving instructions that are scale-free, can you see fractal mutations?
And I think there are some that would actually count for that in very subtle ways. So, you've got a membrane of this neuron, this developing neuron, and you've got it in your membrane, neuron's head, that you want to develop a whole axonal branching system. So, you've got the two layers of the membrane here.
And here in red, you've got growth stuff. Growth stuff, I don't know how it works, what kind of proteins it codes for, if it's from genetics, but you got growth stuff. And the rule here is, this thing makes this membrane begin to bulge out, begin to form the trunk of the axon. So, there's got to be a rule in there, though, which is, when it gets to a certain height ratio of height to width, when it gets to a certain point, you got to get a bifurcation happening.
How do you do that in a system like this? Here's what you program: The inner membrane grows a little bit faster than the outer membrane. Meaning eventually the inner membrane is going to pinch right in this spot and split the red growth stuff in half. Now, totally wonderfully, what happens is you start growing branches there which go for half the length because you've got half the growth stuff.
And once again, the inner membrane is growing faster so that at some point, with a given ratio maintained, they pinch off with the outer membrane and you split this in two. And then you do this and then you do this, and that's exactly how you would do it. You've got some growth factor thingy, and all you need to do is, with each bifurcation, there's half of the growth power in it.
Robin Hiesinger y Paul Green: contar reglas, no moléculas
So, you're getting shorter and shorter branches. And you program it by having the inner membrane grow faster than the outer one. So, it's going to pinch things off and split things in two at various points. I love this model. It is so elegant. It is so beautiful in that regard. In terms of how you can do it, there's a guy at University of Heidelberg named Robin Hiesinger who does research on stuff like this on brain development.
And instead of cloning stuff, he's just like that guy Paul Green who I talked about the other day with potato chips. What he looks at is like, how many rules do you need to come up with an axonal tree?
How many rules? How many rules in theory to run systems like these? And what people are beginning to see now is, they're identifying the handful of genes, the tiny numbers of them, that could generate reiterating systems like this that bifurcate, bifurcate over and over. Genes, for example, that will make the inner layer grow faster than the outer one and guarantee that this is going to happen.
And genes, just a handful of them, that are doing the same thing in neurons and in the developing pulmonary system and the circulatory system because these are not genes for the development of axonal trees. These are not genes for the development of the circulatory system. These are genes for bifurcating systems in a scale-free way, which is totally fantastic.
I love this. And you run this and you get these almost impossible solutions. You wind up having axons talking to an impossibly large number of other neurons without having to use up too much axonal space. You've got a circulatory system that's everywhere while taking up something approximating taking up no space, and beautiful ways of coding for it in scale-free ways that will work whether this is a developing tree or a developing neuron or anything in between: scale-free instructions.
Okay. So, that is great. So, this is our world of the power you get from bifurcating, bifurcating, trifurcating – whatever it is. And with the critical component in there is, you could see how individual differences and genes will play out in these things, and you can see how environment will play out. And be born at high altitude and you will get an epigenetic something here that will make a bushier pulmonary system so you could do more efficient oxygen exchange.
La coliflor romanesca
So, this is another whole domain. On the handout, there's a picture of a Roman-esque cauliflower, which I think even though it looks like a broccoli, it's apparently cauliflower and is the coolest thing on earth. And go out and buy one and immediately give up on any plans of eating it because you just want to look at its rich complexity of fractal whatever it is that it is bifurcating over and over and over.
Sin plano: la ciudad que se diseña sola
And people have now isolated two genes in this plant that generate the bifurcation pattern in a scale-free way. And where we can appreciate this is by looking at urban planning. So, you're building a model town, and you and your whole committee of urban planners, you're meeting every other week for years and you're designing stuff.
And finally you get around to the point of deciding, where are we going to put the stores? Where could we put the stores in this new town? And somebody comes up with a completely useless recommendation that, 'Oh, let's just scatter them randomly all over the place.' All right, that's not going to work, because when people go out shopping to a store, they want it near other stores so they can be more efficient.
You can't just scatter it. So the person chastened goes away and comes back the next week and says, 'Aha, okay, I've got the solution. In the center of the town, there's going to be this one mega shopping center with every single store in the town right there.' And they say, 'You know, that's great.
We've just solved the problem of things being randomly scattered over. They're more efficiently located. But we got a problem, which is, this is going to make such a dense clot of store-ness going on there that not only are we going to have terrible problems with parking spaces because of the perimeter issue, but the stores in the very center are going to suffocate.
They're going to be so far in, and it's so inconvenient to get through all the other stores that they're going to get no business. They're going out of business.' Okay, you can't do that. You can't have all… So the person goes away chastened and comes back the next week and says, 'Okay, here's what I've come up with again.
Instead of a gazillion randomly distributed stores, or all of them, here's six different shopping centers.' And people say, 'Whoa, okay, now we're getting somewhere,' until somebody notices something that is a bit challenging, which is, 'Okay, you've got six of these different shopping centers, and collectively the town has 12 coffee shops, and the planner has stuck all 12 of them in this one cluster and the other five have none.' Okay, that isn't going to work.
You can't just now decentralize and have a bunch. You got to pay attention to the distribution of specialized stores within each clump. You want to pay attention to the ratios so that every one of these is going to have at least one or two coffee shops. And every one of this, you've got to start paying attention to the ratios of the constituent parts.
So the person goes away and comes back and has figured this out. And okay, they now have two coffee shops for each one, and they've got three Mongolian barbecue places in the… and it's all evenly distributed. It's totally great. And the committee says, 'That's wonderful as well. There's one more thing though: within these clusters, some of the placements are problematic.
Like, look for example, you put the bar here right next to the church. Nobody's going to go into a bar if they see the church right next door. They're going to feel too guilty and debauched and all of that. They can't be right next to each other. And here's a useful thing: maybe you should put the library or you should put the bookstore right next to the optometrist.
People are reading, reading. Those will tend to come together. And whatever you do, don't put the gelato place right next door to the fitness center, because they're going to go into the gelato place and say, "Oh, I shouldn't look at all these fit people working out."' You can't have those next to each other.
And whatever you do, don't have the sweatshirt store that sells sweatshirts that say 'God bless America' next door to the one that says 'God bless America.' Okay, so you got to pay attention to the distribution within each one of these. And at that point, you work that out, and it's totally terrific, and everybody gets their paycheck on this development board and goes out and celebrates.
And you could have done all of this in an emergent way instead. And what you see in the handout in the diagram there is exactly how the nervous system does this and winds up with clusters of shopping malls connected by big thoroughfares. And you look within each one of these shopping malls and it has exactly the characteristics we had to just get for.
Cómo lo hace el sistema nervioso: atracción, hipoxia y repulsión
You've got ratios. I mean, you're not having all of this cell type in this one and none in that. You get the ratios right. You get adjacencies right, all of that. How do you do this in the nervous system?
And as follows, with this exciting time-lapse photograph series. Okay. So, you are studying neurons in a petri dish. And what you do is you take them out of a brain, and there's all these steps you do that turn them into these little round spheres of baby fetal neurons that now have the potential to grow out.
So, you dump a whole bunch of them, and they're just randomly scattered all over the plate there, just like that first idiotic solution of, 'Let's just randomly scatter the stores all throughout the town.' So, there's a simple rule: Each one of these baby neurons secretes an attractant factor that tends to pull other neurons towards it.
And thus, what you're going to see is, where do we have an example of two that just happen randomly by chance to be close to each other? Their mutual attraction is going to form them to come, cause them to come together so that there's two of them in a cluster and now having twice as much of an attractive power.
And the same thing is happening with all the others. And soon what you will get is a bunch of clusters like that simply by attraction rules. So, in principle, you can get into trouble now, because saying, 'Well, all of them just attract each other,' they're all going to turn into one gigantic clot of all the cells clumped together, or each individual clump is going to get really big.
And we've got the same problem again of, 'Oh, let's just have one shopping mall in the center.' There, you get the exact same problem, which is, as more and more cells join into each cluster, the cells in the very center (in red) begin to run out of oxygen. They become hypoxic because they're smothered in there in the center there.
And all you need to do is have hypoxic neurons give off a molecule that counters the attractant molecules. Stop recruiting new members, and it stops. It doesn't get any bigger than this because the neurons in the very center there are getting allayed and sending out a signal, 'This is as big as we get.' All you need to do is secrete a molecule that neutralizes the attractant molecule.
Okay, so you've gotten to this point. What's the next thing? As soon as that 'don't grow anymore' molecule pops up there, it has a second function: and it prompts these neurons to start growing projections. Projections to the nearest possible neuron. And each one of these clusters wires up at that point. And following rules just like traveling salesman ants, just go project to the nearest neuron.
Everyone just go to the neuron that's closest to them. And soon you get clusters like this. And as soon as you get a certain density of local wiring that generates a factor that inhibits the local wiring signal, and it turns on a long-distance signal. And now suddenly these clusters of highly wired-up neurons here start sending out long-distance projections, wandering in every possible direction while at the same time each of these clusters is now releasing an attraction molecule.
And by definition, this forms a gradient surrounding the innermost part of this cluster. This interconnected cluster is the thickest concentration of this attractant stuff. And as you go out, there's a little less and a little less. And there's a gradient. And you were growing this way. You are set up. So, you pay no attention to your own gradient that you… but you catch the first hint of one of those and you grow towards it.
And then there's an even stronger signal, and a stronger, stronger signal, and you begin to wire up. And the ones that are heading off in some completely pointless direction get trimmed off for lack of connectedness, and you wind up with like an urban planning with different shopping malls here and major thoroughfares connecting them.
And all you started off with was a whole bunch of simple little baby neurons with no projections yet, none of whom knew the other one. They're all strangers. Very simple rules. And you throw them together and you come back a while later and they have come up with an optimization of clustering of function, connecting with the shortest possible amount of money spent on axons.
You were doing a traveling salesman solution. So, you're doing that that winds up doing that for you. And what you've done this with is now our third motif. The first one: founder generation broadcast louder for better things, wandering second gen. Our next motif: the scale-free bifurcation way of coming up with almost impossibly efficient things in finite space, finite spaces.
The third motif now that we've just seen in making this little town without urban planners, setting up neuronal clusters (nuclei, the starts of nuclei) and projections between different parts of the brain, setting it up with simple rules of attraction signals and repulsion signals. Attraction signals pulling them together in the first place, repulsion signals.
Once this close cluster gets wired up with each other, it starts making a repulsant signal so that any new axon starting to grow here is repulsed and instead grows out in this direction. Just switching between positive attraction charges and negative repulsion charges, you get all sorts of optimized solutions coming out with this.
And this is the whole world of like positively and negatively charged molecules finding the least energetically demanding conformation. This is the world of some molecules being attracted to water, others being repelled, hydrophobic, hydrophilic. This is so a whole world of complexity, emergent patterning you can get from just a couple of rules of, 'Okay, let's switch from negative feedback to positive feedback for a while.' 'Okay, let's switch from attracting a growing axon terminal to repelling it.' And with that, you can even then begin to do things like, you know, 'Here's these three outposts, and this cluster of neurons wants to send a projection to there, a long-distance one.' And we're going to see shortly about the advantages of some long-distance ones that's so far away that it couldn't possibly be picking up this one's gradient, but it picks up this one.
So, it starts growing to it. And all that you have to program into the system is, once it gets this close, this cluster starts secreting a repellent signal instead of an attractant one. And thus this is getting and it goes flying past to where you've got a signpost that does a flyby. And that turns out to be this other motif going on there, which as it gets close, if you want it to pass you, you suddenly switch from attractant to repellent.
This is some of the classic work, the actual molecular and biochemical work done early in his career by Mark Tessier-Lavigne, looking at how you wire up nervous systems with attractant signals and repellent signals. And you just get a small number of them, and then suddenly you get things that are as adaptively wired up as something a whole like bunch of urban planners could come up with over a year's worth of meetings.
El pueblo del río: la regla del 80/20
So here you… you are living under in a very strange circumstance. You are living in a town alongside a river. The town consists of 101 houses. And along the river, the houses are all in a straight line: House number one all the way to house number 101. And this is the village you're living in.
You happen to live in house number one. And you have a choice: which of your neighbors do you interact with? Starting with house number one right next to you, all the way out to house number 100, the furthest away. Which neighbors do you interact with?
And there are a whole bunch of different ways or solutions to come up with. You could come up with the rule that you only interact with your closest neighbor, or you only interact with your furthest neighbor, or you scatter it randomly, or you interact with every neighbor the same amount, or you come up with a normal distribution of interactions where you're doing the most frequent with number 50 and less so in either direction.
But then there's another possible way to distribute your interactions which produces a curve like this. It actually doesn't go past because there's only 100 houses, but I got overly enthusiastic with the marker. You come up with… how can we describe this sort of pattern in English?
Most of the connections are very local, but you still make long-distance connections, but the further away it is, the rarer the interaction. So, this is asymptoting down, getting less and less frequent, even though this looks like it's horizontal. But most of your interactions are local, but you've got a subset that are at a distance, and the more distant the rarer, but you still have the interactions in there.
And this is something that winds up being called a power-law distribution or Pareto distribution. Economists play with this, all of that. And this is summarized in sort of everyday English in something that probably lots of people are familiar with, what is called sarcastically the 80/20 rule. The 80/20 rule. What does the 80/20 rule look like in commercial businesses?
Somebody sits there and like goes through their records and comes up with a, 'Oh my god, you know what? 80% of the complaints I get from customers are due to 20% of the customers. It's 20% who do 80% of the complaining.' And then you go look at my crime statistics, and 20% of the criminals account for 80% of the crimes.
Or then you go look at another version of it. You look in a corporation and 20% of the people are accounting for 80% of the… it's not always 80/20, but you're seeing a way of saying a small subset is accounting for the majority of what's going on. And in the first six months of COVID, you saw the exact same 80/20 rule: 20% of the infected people were accounting for 80% of the spread, the super-spreader idiots off having COVID parties and stuff.
Delfines, peces y microglía: el 80/20 en el mundo social
And what we see is these are all 80/20 rule versions of you mostly have a cluster locally but you have rare and rarer events out at the periphery there. And this winds up in all sorts of social worlds. Dolphins. Dolphins. You've got groups of dolphins that have families. And you look at interactions within families: How often is a dolphin interacting with a close relative versus an unrelated dolphin?
And about 80% of the interactions are within the family, 20% are outside. You do this crazy type of study on a certain type of predatory fish, and you look at how it goes about hunting. And it starts in this spot and it goes and looks for something there. And if it doesn't find something, it looks for something somewhere else.
And then it goes and looks at, and you measure the length of each one of these, and you see something approximating an 80/20 distribution: 80% of the forays, 80% of the journeys, are about 20% of the maximum length that you ever go. Same thing. And you see that that can shift under one very interesting circumstance (we won't get into).
Wow, that's amazing. Now look at immune cells. Look at immune cells in your nervous system that go searching for invasive pathogens. And immune cells, microglia, on the surface of your brain. Go explore here to see if there's anything pathogenic, and then they explore here and there. How far do they go hunting before they go for a new hunting target?
Again, a power-law distribution. About 80% of the hunts by these immune cells are within about 20% of the maximal distance they can go. People argue about whether power laws emerge with some sort of inevitability. Probably not, because you don't see this distribution in all sorts of complicated systems, but you see it instead suggesting there's selection for it.
La corteza como red: lo local y lo de largo alcance
There's something adaptive about a distribution like this. So, let's see what might be adaptive about it in the nervous system. We go to the cortex, and you've got the left hemisphere cortex and the right hemisphere, and all of that, and a gazillion neurons in there. And each neuron has to make a decision: how long of a projection is it going to send out to hook up with another neuron, a bifurcation-type thing?
Is it going to have mostly local connections, dramatically bringing this back in? Is it going to have mostly little local connections within here? Is it going to have long-distance connections? And you look at the cortex and you look at the average length of axonal projections across the entire cortex. And you look at the distribution and it forms a power-law distribution, which is to say roughly 80% of cortical neurons are interacting very locally, but then there's some that are long-distance, and even rarer, there's some that are super-duper long-distance.
One of the most long-distance projections you could get from a cortical neuron. You got a neuron sitting here which sends a projection to the other hemisphere across this band of axons connecting the two hemispheres called the corpus callosum. They're sending super long projections. There's not that many neurons doing that. 80% of the interactions, the projections, are within about 20% of the distance of the maximal projection you will ever see.
Again, it's not exactly 80/20, but something emerges with a power-law distribution like that. So, why is that any good? What's adaptive about that? And this is where network scientists step in. And what they show is, power-law distributions have a number of really useful traits in networks. Most of your interactions are local with like-minded other nodes in the network, with like-minded other neurons that are in the same subpart of the cortex.
What does having mostly clusters of local interactions do? You're spending most of your time with like-minded neurons with the same specializations, solving very familiar problems that come up, the ones that are familiar and easy. And this is what we do all the time, and we've got worked out exactly how to do this effectively.
Why have so many connections there locally? 80%. You see another advantage of it: some of these neurons get killed by an accident and there's enough other connections still remaining there that you could still efficiently do your most common tasks. In other words, it's a cluster that is robust. It is resilient in the face of injury that may wipe out this or that neuron there.
And that's perfect. And that's a way that you can solve most of your challenges, the ones that come along most frequently, the familiar ones, with you and your team. And you all got the same secret handshake. And if a couple of people drop out, it's not a big deal. And then, every now and then, comes along a problem that you, this like-minded little cluster there, haven't a clue how to solve because you've never seen this problem before.
And that's where you better pray that you've got some of these long-distance projections to hook you up with other clusters and innovate. So, you see these highly specialized clusters that are ideal for solving familiar problems and withstanding injury. And then you have long-distance projections that are ideal for tapping into generalists who come up with completely different solutions, because, 'Whoa, I never thought of it that way,' when coming up trying to solve a novel challenge.
And what a power-law distribution does in the cortex, as it turns out, is it optimizes it. This roughly 80/20 distribution is one that is most resistant to local injury and most supportive of local interactions, while at the same time being able to achieve the frequency of long projections needed to solve some novel problems.
And you see exactly that. You take any given nucleus cluster of neurons inside the cortex, and what's the average distance of all the projections coming, and the very rare long one talking to the other side. And this is one that optimizes problem solving between the familiar everyday and the rare novel ones. And the cortex is brilliant at this.
And you'll notice with this carefully calibrated diagram, this one, there's a thicker clustering of local projections than in this one. And this is drawn to be thinner than this. And you've got more local. So, instead of 80/20, you got 81/19, you got 85/15, you got 90/10, or whatever. You've got a tendency towards more local clustering.
So, what's that going to do? That's going to make for a cortex that's better, more efficient, faster, more injury resistant at doing familiar local tasks, but be less capable of doing integrative, holistic stuff, connecting up with other regions there and coming up with novel solutions. So, when do you see this cortical power-law distribution being skewed in the direction of more local clustering?
Los machos: más agrupamiento local
There's one type of organism in which you see this: males. Males. In males, the distribution of cortical projections is skewed to the left: more local clustering. And you can see this, and the distribution of projections there. You can see this. For example, there's very rare projections that go from this side all the way to the other side, the ones way out on the tail there through this corpus callosum.
On the average, the corpus callosum is thinner in males than females. There's less long-distance projection stuff integrating for novel problem holistically. And what do you see? You see enhanced ability to do isolated pockets of expertise but less ability to integrate those. And you do a whole world of sex differences and neuropsychology, and that's precisely males are better at local, analytical problems on the average, once you control for culture.
Females are better at integrative, holistic, transactional interactions within the cortex. So, you see a sex difference there. There's something with hormones, with which chromosomes, sex chromosomes you have, whatever, that will subtly change some ratio rule so that this is the female profile. This is the male profile. On the average, you can't sex somebody by seeing what their power-law distribution is like in their cortex.
La misma inclinación en el espectro autista
But on the average, males tend more towards local clustering of islands, isolated islands of optimized function that have less interconnections with other islands. And people have even shown testosterone has something to do with this. There's another population of humans where you also see a leftward, a leftward skew producing the same thing. And this is people, independent of what their sex is, people with autism spectrum disorder, people on the spectrum.
And what you see, there's stuff with face perception, there's stuff with socialization, there's stuff with sensory processing, all of that. There's a skew towards more local cortical projections, making for more intensely clustered little pockets of function that are more isolated from other ones that can do less integration across different clusters. And what that is about, what the biology is in females versus males, in ASD people versus neurotypicals, what the biology of that is, people are just beginning to sort out.
But you see that you often have isolated, even in people with fairly severe ASD, you will see isolated pockets of great neurobiological expertise that are isolated, less integrated. Listen to it. So, we'sve got this whole world going on, playing around with ratios developmentally of stuff going on in the brain. Okay. So, we now push on to the last two domains of emergent stuff.
Emergencia en una uña del pie
And I put them in because they're just so super-duper amazing, I can't resist it. The very first one. Okay. Here. Do the following experiment: here is a toenail. This is a platonically idealized toenail forming a perfect rectangle. Here's this toenail. And now do an experiment: go in with some scissors and cut the toenail like that.
And then track the toenail for the next months and months and months. And what you see is, by all logic, if each one of these points where a cut was made now does a certain amount of growing, the toenail is going to wind up looking like this, because each of these fronts have grown the same distance.
And instead, what you see is an emergent solution where somehow the toenail stuff at this end knows to grow longer than the toenail stuff at that end. And how does that work? It turns out there's a biomechanical solution, that there's a higher density of toenail-ness here. (I'm like winging it.) Your toenail, because the top of your toenail is thicker because you keep bumping it into things like your socks and boulders and things.
So, this is thicker, and thus as this grows up into there, there's more spatial hindrance, which then translates into more spatial hindrance when this part gets up to there and this part. I'm making this up, but it's got to be something like this. And that's how you've got this emergence. There's no little piece of nail there that says, 'Aha, because I'm here, I'm supposed to grow a little bit more than this guy to my left, but this molecule to my right, a little bit less.' So, there's no rules like that.
It just emerges from a property of what the tops of nails turn out to be like. They're blunted and they have more mechanical inertia, and you wind up with this. Why is that so cool?
Why do I see that as the most super-duper amazing emergent thing? Because about 10 years ago, I got an email from an 82-year-old retired engineer living in Bombay who had just done that experiment on one of his toenails and had taken pictures with each passing week and sent them to me to see this play out.
Organoides cerebrales: neuronas que construyen un cerebro
And I was so happy that he did that. So, that's another realm of like toenail emergence. But then, truly stopping you in your tracks emergence. The final example you see in the handout there: organoids, pictures of brain organoids. What are you doing here?
Back… to… you get a whole bunch of little baby neurons without connections yet, and you just throw them onto a plate, a petri dish, a carpet, and they form a carpet, and then they start doing that whole thing so that before you know it, you've got this coming out the other end. What you do with brain organoids is you take those same little baby neurons that don't have any projections yet, and instead of throwing them on a carpet, you just suspend them in a solution three-dimensionally.
And what happens then? Exactly the process we went through there with forming the shopping mall motif. They begin to attract each other and they begin to clump together. And once they clump, they begin to differentiate in specialized ways. And the staggering thing about these brain organoids (the picture you have there, these are microscopic) is, they come together.
They self-assemble, and they begin to self-assemble and form things that look like, oh, it's on the other side, that look like the starts of fetal cortical layers. These tiny baby neurons who have never met each other all somehow emergently, with simple local interaction rules, begin to come together to form a brain. They build a brain on their own.
And at this point, people are really stopped in their tracks by this because you see staggering sorts of stuff. Not only do you begin to see the starts of a primitive, primitive cortex self-assembling, but one group now has shown that as it begins to self-assemble, you get very primitive brain waves coming out of there, like you see from the nervous system of a first trimester fetus.
And people are now futzin' around doing things like, make these brain organoids but stick in a Neanderthal gene and see what happens. Or hook up your organoid to a muscle organoid and see if they can direct each other to contract on commands from this. Or stick it up to a robot. And amazing.
And, 'Oh my god, are we making like mini consciousness there?' The consensus in the field is this is so far away from anything that would resemble that. But nonetheless, there are already bioethics panels that are beginning to figure out how would we know if there's a brain organoid that eventually has become conscious.
Whoa. Think about that tonight. But most amazingly for our purposes is three-dimensional self-organization encompassing every one of these rules and motifs here that we've had, beginning to build a functional brain all on its own. Okay. So, how do we begin to make sense of all of this?
Las piezas no son especiales: el genoma del chimpancé
First off, how do we make sense of it? This applies to us as a species. There's something very challenging in making sense of why our brains are so special, because the building parts are not so special. You look at a neuron from a fruit fly and you look at one from us, and it's all got cell bodies, and they both have axons, and they both have action potentials, and they both have like virtually all the same genes coding for how you do action potentials, and they're exactly the same.
And what makes us different from Drosophila? It sure isn't that we have individual neurons that are fancier, that are releasing neurotransmitters that you never see in fruit flies, all of that. We've got the same idiotic, simple, local component parts, with just a relatively small number of how you interact with 50,000 of the 80 billion in there.
It's just you do it, and you suddenly get human stuff coming out that you couldn't get out of a fruit fly with 100,000 neurons, and we've got 80 billion. So, now we see another version of the same punchline: Back when people got the human genome, when all of you were just zygotes or something, and shortly after that, people got the chimp genome.
And for decades we knew sort of a dogma: chimps and humans share 98% of their DNA. (Back to our molecular lectures how that's calculated.) But now finally, we could find out what's the 2% of DNA that's different between humans and chimps, because that's going to explain everything. And people went and studied that, and it was this vast disappointment.
Half of the genes that differed coded for olfactory receptors, and chimps had a better sense of smell than we do. Whoa, that's not very interesting. Then you look and like half of the remaining ones have to do with like immune function, and the other half have to do with like whether you grow hair on your shoulders or not.
Los genes que importan: cuántas rondas de división
And there was just a handful of genes that were specific to the brain. How could that be? And people went and explored. And what those very small number of genes tend to be about is how many rounds of cell division stem cells go on in the fetal brain in making new neurons before they stop.
How many rounds of an exponential doubling? How many bifurcations? And the gene versions we have push for a few more rounds of doublings than chimp brains do. What has that just told us? A very simple rule: How many rounds of bifurcations do you make?
And if the rule is, you got three or four more doublings in the human brain than the chimp brain, that's why it's like three, four times bigger. And then you suddenly realize what makes human brains human brains is just emergent stuff. If you got a developing chimp brain to go three, four more rounds of cell division, the chimp brain would be like us.
It would be a brain which would have emergent properties like being able to invent theology and aesthetics and philosophy and economic systems, and who knows what theology for an eight times larger than normal chimp brain. I will bet will look very different than the emergent property of theological belief humans have come up with.
Lecciones: más es distinto, sin planos y con azar
What is it between us and them? We've got 'more is different' going for us than chimps do. And just if you had chimps go through a few more rounds of bifurcations, the chimps would be like humans. Okay, so what have we been learning from all of this?
We've got, you know, the broad lessons of emergent systems that you could get these complex, adaptive things with properties that could only be described at the emergent level: wetness at the emergent level, theology at the emergent level, all of that, from very simple component parts that would be doing the same thing in us as in a fruit fly brain.
And you get all of this adaptive, complex stuff going on without blueprints. What are some of the larger lessons out of this? Out of this, both emergence and chaos, and the failure of reductionism. (Please go read the chaos chapter.) What we see repeatedly is this theme of 'more is different.' With enough quantity, you invent quality that was not there before.
With enough chimp neurons that are divided a bunch more times, you get chimp brains that are going to invent musical theater or who knows what. You're going… With enough quantity, you invent quality. The key building blocks in any of these really fancy, adaptive, emergent systems is, the building blocks don't have to be fancy themselves.
They can be idiotically simple. And when something amazing like a brain forms, they're just as idiotically simple as they were when they were one little fetal neuron at a time. It's no more fancy. Just have many simple components with just a few rules for interacting with the neighbors. And recall of all the different algorithms people sent in for how would you optimize your Prisoner's Dilemma play, all of that.
It was the simplest set of rules that outcompeted everyone else: Tit-for-Tat. It had the fewest number of rules, and that is one where it would have lost any given battle, but with enough iterations, with enough 'more is different,' it emerges as the most optimal solution. You see the importance of something that we normally disdain, biological systems, and think is just like so messy and noisy, which is randomness.
Lo normal es un emergente, y lo de abajo arriba
All of those emergent ones require a first scout generation, but it then requires a second generation doing random stuff. Gradients of attraction and repelling are really important. Have lots of local connections but don't forget the global ones, because you want to get an optimal balance between solving the familiar easily and then having a prayer of coming up with a novel solution for something never seen before, and you want to get the optimal balance at that.
Somewhere coming out of this is the notion that 'normal' is just a statistically emergent property. There is no person who has a normal level of height or intelligence or beauty or affability or any… 'normal' is just an emergent. 'Normal' is imaginary. Every one of us is discrepant from the norm. No matter how cool the cool kids are, seemingly right in there, all of us are discrepant.
'Normal' is an emergent invention. Almost at the end here. What we see, especially with long-distance projections within our specialized world (and all of you, I suspect, having many pathways after Stanford that would send you down some very, very specialized routes so that 20 years later you're one of Earth's six experts on something or other): Amid that, generalists are critical to these emerging systems being adaptive.
Finally, all of this stuff, you can have organized, adaptive, successful, wonderfully ornate things being pulled off, and they can all be bottom-up. You don't need blueprints. You don't need a blueprint maker. You don't need a centralized executive authority that compares the options. Bottom-up stuff. Which is why whether you were looking at sort of bottom-up in terms of wiring rules, or 'more is different' bottom-up enough, like stomped on, like poor peasants or whatever who finally do a bottom-up thing: they are going to topple the executive up on top every single time, decentralized, upward, without a blueprint and without a blueprint maker.
Fin de la primera parte del curso
Okay, so this officially brings us to the end of part one of the course. And starting on Monday, we will start with our specific behaviors, looking at it from neuro, from endocrine, from environment, from ethology, all of that. Looking at where some of the emergent stuff is going on that cuts across them, starting on Monday with sexual behavior and affiliative behavior.
Retomamos: la emergencia y sus motivos
Retomamos la emergencia. Recordemos la idea básica: empiezas en un mundo lleno de componentes pequeñísimos y estúpidamente simples, que solo tienen unas pocas reglas para interactuar entre ellos. Y en una demostración maravillosa de por qué «más es distinto», si juntas suficientes de esos componentes, muy a menudo emerge algo.
Por encima de eso emerge un nivel de organización que se autoensambla, que hace algo muy complicado y muy adaptativo y que, cosa crítica, tiene propiedades que solo se pueden describir en el nivel emergente. No hay nada en una molécula de agua que llegue a enseñarte qué se siente al estar mojado. Así que emerge en ese nivel y, lo más importante, dentro de esa adaptatividad, sin plano previo, sin mando centralizado, sin ningún elemento ahí que tenga información sobre dos fuentes posibles distintas, sobre dos sitios posibles: todo simplemente emerge.
Primer motivo: la exploradora, el reclutamiento y el «rico se hace más rico»
Y veíamos, en nuestro primer ejemplo, ese motivo en un montón de dominios distintos: tienes una generación de exploradoras que sale, consigue información sobre algo maravilloso que todo el mundo quiere conocer y vuelve. Y el punto crítico es que cuanto mejor es la noticia, con más intensidad se da la señal.
Y luego una segunda generación de vagabundos aleatorios que se topan con las señales de reclutamiento sobre lo que se ha encontrado. Y como la fuente mejor recluta más fuerte o durante más tiempo, es más probable que la recluten a ella, lo que refuerza eso, refuerza el «el rico se hace más rico», y tenemos un aumento exponencial. Veíamos una versión de esto empezando con las abejas.
Este sitio nuevo potencial está a la mitad de distancia que aquel, lo que significa que a este van a llegar más veces y va a acumular más seguidoras, con un aumento exponencial. La misma lógica aquí, donde un sitio es el doble de bueno que el otro: el individuo vuelve y lo difunde más fuerte, en forma de bailar el doble de tiempo, lo que hace mucho más probable que uno de los vagabundos aleatorios de la colmena se tope con ella, se sume, vuelva y baile el doble de tiempo; y el mismo aumento exponencial.
Hormigas y mohos: el viajante y el laberinto
Vimos después, conceptualmente, exactamente lo mismo en las hormigas: cómo resuelven el problema del viajante con un montón de sitios de forrajeo. No quieren tener caminos de más que recorrer para llegar a cada uno de esos sitios, en el caso ideal solo una vez. ¿Y cómo lo hacen?
Con una generación de exploradoras que sale y deja un rastro de feromona entre dos cualesquiera de esos sitios. Y, cosa crítica, cuanto más corto es el camino, más grueso es el rastro de feromona. Las feromonas se evaporan con el tiempo. En otras palabras: cuanto más corto es el camino, igual que aquí, más tiempo va a persistir la señal de feromona. Y luego entramos con nuestra generación de vagabundos aleatorios, que se topa con cualquiera de esos rastros.
Y la regla es: si te topas con un camino de feromona, te unes a él y lo refuerzas. Y así, como los caminos más cortos persisten más tiempo, lo que emerge es algo cercano a la solución óptima. Totalmente asombroso en ese sentido. Más ejemplos. Más ejemplos. El siguiente tiene que ver con algo que casi nunca se menciona en neurobiología: los mohos mucilaginosos.
Los mohos mucilaginosos. Tuve que buscarlos. Son como amebas, células ameboides individuales. No sé qué come una ameba individual, pero hay momentos en que todas tienen que juntarse y formar esta gran colonia social. Todo este asunto en el que hay un montón de esas células ameboides ahí dentro, que forman una colonia de moho mucilaginoso, todas unidas por puentes entre ellas, y la cosa puede fluir y fluir por ahí y salir a buscar fuentes de comida.
Así que vas a ver un moho mucilaginoso fluyendo por ahí. Y lo que la gente averiguó es que los mohos mucilaginosos son listos. Saben resolver puzles. Saben resolver laberintos así: pones una porción de moho mucilaginoso. Aquí tienes un laberinto. Dejas caer un poco ahí. Y aquí tienes algo maravilloso: no solo esto, mágico, sino al parecer copos de avena.
Todos los estudios alimentan a los mohos mucilaginosos con copos de avena. Así que aquí hay unos copos de avena irresistibles. Y el moho mucilaginoso empieza a fluir en todas direcciones. Y con el tiempo llena todos estos pasillos. Y entonces te vas a comer, unos copos de avena, y vuelves después y verás que aquí solo queda una única línea recta de moho mucilaginoso.
¿Cómo lo han hecho? Fíjate en que, al resolver este laberinto, el moho mucilaginoso evita el callejón sin salida y evita la ruta menos eficiente hacia la misma fuente de comida. ¿Cómo funciona esto? Con una regla muy simple, y sale otra vez de lo mismo: hay un reparto aleatorio, y ahora tenemos que ver cuál es la señal del moho mucilaginoso.
En cuanto el moho mucilaginoso se topa con una fuente de comida, las células que están en el frente empiezan a tirar hacia ella. Tiene sentido. Los copos de avena tiran hacia delante. Y adopta una forma en la que todas estas conexiones, estas conexiones proteicas, se van poniendo paralelas, lo que genera una fuerza de tracción muy fuerte.
Y así, cuanto mejor es la fuente de comida, más células se meten de inmediato en este patrón y empiezan a tirar. Y ahora el reclutamiento se refuerza. Cuanto más fuerte tira, más células de las siguientes de la fila quedan arrastradas a esto. Y más y más, y lo que ves es que en el siguiente periodo de tiempo esto se retrae hacia aquí.
Esto se retrae no porque haya ninguna ameba ahí dentro diciendo «vaya, este camino es mucho mejor», y no porque ninguna célula tenga información sobre nada más que el camino que ha tomado, sino simplemente por esto que emerge: empiezas a tirar hacia la comida. Cuanto mejor es la comida, más fuerte tiras.
Cuanto más fuerte tiras, más células reclutas para reforzar y amplificar ese mismo camino, que se hace más rico. Y antes de que te des cuenta, el moho mucilaginoso ha resuelto el laberinto. Esto dio lugar a uno de los grandes estudios de todos los tiempos en Nature o en Science (nunca me acuerdo de cuál) hace unos años. Y tiene que ver con moho mucilaginoso.
El moho que dibuja la red de metro de Tokio
Y lo que pasaba ahí era lo siguiente: te mostraban una especie de mesa con una barrera de forma rara alrededor y toda clase de pequeños montones de copos de avena. Y los investigadores dejaron caer un poco de moho mucilaginoso en medio de eso. Y lo que hicieron fue irse un rato y volver, y lo que vieron fue algo parecido a lo del viajante de las hormigas.
Había un camino de moho mucilaginoso que conectaba cada copo de avena con cada uno de los demás copos de avena. Eso está muy bien. Pero luego los mohos mucilaginosos hicieron lo mismo que las hormigas con la eficiencia. Te vas más tiempo y vuelves y ahí hay una red de conexiones muy optimizada. No cada grupo de copos de avena conectado con absolutamente todos los demás, sino una ruta bastante óptima.
Vale, eso es muy elegante. Y luego, lo que deja a la gente vitoreando y pidiendo más, se revela que estos investigadores de la Universidad de Tokio —creo que esa cosa de la barrera es el contorno de Tokio por la costa— y que cada grupo de copos de avena correspondía a una estación de tren del sistema de metro de Tokio.
Y lo que se vio fue lo siguiente: dejas el moho mucilaginoso ahí un rato y llega a algo estadísticamente indistinguible de la ruta optimizada de distintas líneas de metro que conectan unas estaciones con otras. Madre mía, esto es totalmente asombroso. Es totalmente asombroso, puedes apostar. Un montón de urbanistas sentados a pensar cuál es la forma más eficiente, cuál es la manera de minimizar la cantidad de túnel que hay que construir para montar todo el sistema.
Y los mohos mucilaginosos lo resuelven, una vez más, con lo mismo: una generación de exploradoras que se reparte por todas partes. Cuanto mejor es el recurso, más señal de reclutamiento. Y luego los vagabundos aleatorios quedan atraídos hacia eso. «El rico se hace más rico», y lo resuelves. Así que abejas, hormigas, mohos mucilaginosos y neuronas, que es adonde nos llevaba todo esto.
La corteza fetal: las gliales radiales como exploradoras
Miremos aquí la corteza, la corteza de los primates. Es magnífica. Lo que ves es que forma un montón de capas que en este diagrama todavía no se han formado. Esta es la corteza fetal. ¿Y cómo consigues las capas estructuradas en la corteza?
¿Cómo se desarrolla? Y no solo se desarrolla, sino que lo hace de la manera más óptima posible. Lo que ves es exactamente lo mismo. Hay una generación inicial de exploradoras. Estas cosas llamadas células gliales radiales. Y lo que hacen es crecer una proyección desde el centro del núcleo de lo que va a ser la corteza hasta la superficie.
Y lo que ves es que algunos de esos caminos hacia la superficie son más eficientes que otros, son líneas rectas en lugar de estas que serpentean por todas partes. Algunos conectan de forma más eficiente esta región con la superficie de allá arriba. Así que tenemos proyecciones más eficientes de esta primera generación y otras menos eficientes.
Entonces, ¿cómo hacemos que los caminos mejores den una señal más fuerte? Muy simple: cuanto más corto es el camino de aquí a allá, más molécula atrayente segregas, y con más fuerza reclutas a tu siguiente generación, que son neuronas bebés, atraídas por ese atrayente. Cuanto más eficiente es el camino a la superficie, más neuronas se ven atraídas hacia él.
Y entonces esas neuronas suben por aquí, llegan arriba y con el tiempo alcanzan la cima y dan la misma señal atrayente, que capta más neuronas hasta que acabas teniendo estas capas de aquí. Y lo que pasa en ese punto es que una biología celular muy elegante se deshace de las que no sirven. Y si multiplicas esto un montón de veces, ves lo que se llaman minicolumnas corticales, donde las neuronas están funcionalmente relacionadas.
¿Cómo consigues eso? Con exactamente el mismo motivo: las primeras exploradoras, que tienen una manera de decir y difundir con fuerza si tienen una solución más eficiente para lo que sea. Y eso recluta a la generación de vagabundos aleatorios, de modo que es más probable que se sumen a las fuentes mejores, porque la señal es más fuerte.
¿Es esto inteligencia? La abeja que simula a un matemático
Y al sumarse, emiten todavía más señal de reclutamiento. Y llegas a esto, y es razonable preguntarse: ¿estamos ante inteligencia? ¿Estamos viendo inteligencia: inteligencia de abeja, inteligencia de moho mucilaginoso, inteligencia neuronal?
No porque el cerebro entero sea inteligente, sino porque en este nivel, ¿debería esto empezar a contar como inteligencia, como inteligencia flexible, cuando solo ves estas reglas simples funcionando? Y eso, creo, en cierto modo es cuestión de gusto. Pero hay una cita maravillosa. Thomas Huxley, el famoso bulldog de Darwin, que en la década de 1870 escribió una frase que a mí me parece maravillosa, porque estaba llegando a estos principios como un siglo antes de que se entendiera cualquiera de las piezas de las que están hechos.
Inteligencia de enjambre, robots y el fallo de un supuesto
Escribió que cuando ves a los sistemas biológicos haciendo cosas asombrosas, simulan inteligencia, como una abeja simula a un matemático. Me encanta esa cita. Es una cita estupenda. Y lo que ves es este camino: todos estos ejemplos de lo que ahora se llama inteligencia de enjambre. Y hay toda clase de roboticistas que estudian esto y programan sus robots en modos de resolver problemas que siguen esta pauta.
Como decía, las compañías de telecomunicaciones que quieren minimizar la cantidad de cable que tienen que gastar para conectar cosas lanzan hormigas virtuales y obtienen así rutas óptimas. Y en la corteza, lo que ves es que cableas la corteza como corresponde gastando lo mínimo posible en esos andamios, porque son las proyecciones más rectas, las mejores.
Vale, así que esto es totalmente maravilloso. Y aquí se ve este tema: muchísimos participantes. Una sola abeja no puede resolver esto. Hacen falta un montón de hormigas para resolver aquello. Un montón de células de moho mucilaginoso se suman a todo eso. Muchísimos participantes muy simples que tienen una regla simple, que es: si me topo con una abeja que baila, voy a ver qué está difundiendo.
Si me topo con un rastro de feromona, me uno a él y lo refuerzo. Si me topo con una de estas cosas, como me atraen mucho más estas que las menos óptimas, me sumo, y «el rico se hace más rico», y emerge una colmena capaz de encontrar un sitio nuevo sin que ninguna abeja tenga información sobre los dos sitios posibles, sin ninguna toma de decisiones ejecutiva centralizada y sin un plano al principio, y llegan a la solución óptima.
Hay algunas circunstancias raras en las que no llegas a la solución óptima, y tanto quienes estudian estas cosas como los roboticistas han mirado algunas de ellas y a menudo se han topado con ellas, cuando se llevan un mordisco en el trasero porque se olvidan de un pequeño supuesto y la solución acaba siendo inútil del todo. Vale, aquí va un ejemplo.
Este era un estudio en el que la gente, roboticistas, intentaba programar una de esas cosas tipo Roomba que se movía por una habitación con toda clase de obstáculos. Y lo que se suponía que tenía que hacer: llevaba un parachoques delante y, cada vez que chocaba con algo, rebotaba y aprendía a intentar evitarlo.
Y lo que acababas viendo, como estaba programado para evitar golpes en el parachoques, es que se supone que ahora tenía que encontrar alguna manera óptima estupenda de atravesar la habitación. ¿Y qué encontró en su lugar?
Va simplemente hacia atrás y choca con todo, porque ahí no tenía parachoques. «Ay, se nos olvidó decirle que no puede ir hacia atrás». Ejemplos así. Pero en la mayoría de estos casos obtienes la solución ideal, o algo muy, muy cercano. Y la obtienes sin un plano, sin un autor del plano, sin un tomador centralizado de decisiones ejecutivas y todo eso.
Segundo motivo: geometría fractal, patrones sin escala
Y emerge. Es maravilloso. Vale, nuestro siguiente motivo: otra manera en que reglas emergentes simples pueden hacer cosas increíbles. Vale, y aquí es donde conseguimos que ocurran cosas infinitas dentro de espacios finitos; cosas que son imposibles espacialmente en la geometría normal, la tradicional, pero que se pueden resolver con lo que ahora se llama geometría fractal, patrones que no tienen escala.
Y verás que esto se hace en toda clase de sistemas biológicos, incluidos nuestros cerebros, para llegar a soluciones realmente óptimas, y una vez más usando algunos de los mismos motivos. Vale. Fíjate aquí: tenemos esta línea recta. Tenemos esta línea. ¿Y qué significa ese número?
Mide 100 unidades. Y lo que haces es entrar y quitarle el tercio central. Así que ahora hay dos líneas con una longitud total de 66, 66,6. Ignoremos eso. Luego entras e iteras. Haces lo mismo otra vez. Quitas el tercio central de cada una de estas.
Ya tienes cuatro de estas, de 44 cosas de largo. Hazlo otra vez. 28, 8, 16, todo eso. Y como no tienes nada mejor que hacer, hazlo para siempre. Hazlo hasta el infinito. Y llegas a algo absolutamente imposible. Vale. Aquí vemos que, a medida que pasamos por cada nueva ronda, el número de líneas aumenta de forma exponencial.
Y seguiremos haciendo eso. Y conforme pasamos por esas rondas, la longitud total, la cantidad de espacio que ocupan las líneas, se desploma. Así que lleva esto al infinito y obtienes algo absolutamente imposible: un patrón de puntos que están presentes de forma infinita, infinitamente frecuentes, y que ocupan una cantidad infinitamente pequeña de espacio.
El copo de nieve de Koch y la esponja de Menger
Esto —está en todas partes, pero no ocupa espacio—. Parece imposible, pero esto es lo que sale cuando iteras, cuando haces esto una y otra vez y lo llevas al infinito. Otra versión de lo mismo. Ahora lo que vemos es que partimos de este triángulo. Esto se llama copo de nieve de Koch, el matemático que lo descubrió.
Ah, esto se llama conjunto de Cantor, otro matemático del siglo pasado. Y aquí tienes un triángulo, y fíjate en la regla parecida: quita el tercio central de cada uno de estos y haz con él un triángulo más pequeño. Así pasamos de tres puntas a seis puntas, y luego el tercio central de cada una de estas, y vuelves a hacerlo.
Y luego lo haces otra vez, y puedes apostar que me pasé horas dibujando esta cosa. Y lo que ves es que, con cada una de estas, el volumen aumenta. Aumenta, pero de una manera que se estanca rápido. Mientras que el perímetro, la cantidad de espacio que rodea esto, no deja de crecer y crecer de forma exponencial...
¿Qué tienes aquí? Una versión bidimensional de esta cosa imposible. Aquí tenemos puntos que están en todas partes y son infinitamente abundantes, pero ocupan una cantidad infinitamente pequeña de espacio. Aquí tenemos un objeto cuyo volumen crece de forma finita, pero cuyo perímetro va a hacerse infinitamente más grande, lo que parece imposible.
Y luego tienes una tercera versión de esto, la que se llama esponja de Menger. Y ahora lo haces en tres dimensiones. Empiezas con un cubo y le quitas el noveno central. Puedes ver el tercio central aquí, el tercio central en cada una de estas dimensiones. El mismo motivo otra vez: lo quitas de este lado del cubo, de este otro y de este otro.
Y eso está muy bien. Y luego iteras otra vez. Haces lo mismo con esta matriz. Quitas el tercio central. Lo haces. Lo haces una y otra vez. Vas excavando agujeros aquí que atraviesan el centro y todos los lados. ¿Y qué consigues mientras te pasas los años haciendo esto hasta el infinito?
Consigues algo que geométricamente es imposible. Consigues una estructura que tiene una cantidad infinitamente pequeña de volumen, pero una cantidad infinitamente grande de superficie. Esto es imposible. ¿Cómo puede funcionar así?
Pero lo que ves es que solo con hacer esta cosa fractal, ignorando la escala y limitándote a repetir una operación una y otra vez, te acercas a una infinitud de algo imposible: algo que está en todas partes pero no ocupa espacio, que tiene un volumen finito pero un perímetro infinitamente largo. Algo que no ocupa espacio pero tiene una superficie infinitamente grande.
Infinito en espacio finito: el sistema circulatorio
Así que todo esto es formalmente imposible hasta que haces este tipo de cosa fractal. Entonces, ¿dónde entra esto para explicar el mundo de los seres vivos que nos rodea? Toda clase de cosas del mundo biológico tienen un problema que empieza a sonar a intentar meter el infinito en un espacio finito. ¿Y qué quiero decir con eso?
Aquí hay algo que ves: el sistema circulatorio de nuestro cuerpo es totalmente asombroso. No hay ninguna célula de tu cuerpo que esté a más de dos o tres células de un capilar. Vaya, eso es increíble. Necesitas sangre. Hay un aporte de sangre cerca de absolutamente cada célula. Eso son kilómetros y kilómetros de vasculatura que vas a necesitar.
Pero al mismo tiempo, el hecho de que todo el mundo esté a un par de células de un capilar hace que tu sistema circulatorio sea solo el 3 % de tu peso corporal. Ya sabes, dentro de los límites de la realidad, no puedes hacer cosas infinitas con nosotros y nuestros cuerpos y esas cosas. ¿Qué acabamos de ver?
Un sistema que está prácticamente en todas partes. Está en todas partes a un par de células de distancia y se acerca a ocupar cero espacio. Es exactamente esto. Es exactamente cada uno de estos, que es la solución a lo que en principio era: «Madre mía, si cada célula de tu cuerpo tiene que estar cerca de un capilar, vas a dedicar como la mitad de tu peso corporal a un sistema de capilares». Y en lugar de eso hay otro tipo de solución, que es bifurcar, dividir, dividir una y otra vez con un patrón de ramificación en árbol: dividir, bifurcar.
Y con cada una de estas divisiones hay muchos más puntos, cada uno de los cuales es mucho más pequeño. Y esto es lo que hace tu sistema circulatorio: llega a —y cito, no tengo ni idea de quién mide estas cosas, pero me lo creo por fe— 48.000 millas de capilares dentro de cada uno de nosotros.
Bifurcación: haces algo muy simple. Te divides, y entonces tienes dos cosas más finas que la original, y vuelves a bifurcar, y otra vez, y otra vez, y otra vez, exactamente lo mismo. Y acabas con un sistema circulatorio que se aproxima al infinito en todas partes y a la vez se aproxima a otra infinitud: ocupar ningún espacio en tu cuerpo.
Pulmones, árboles y árboles axónicos
Y ves estos sistemas bifurcantes por todas partes: esta ramificación en árbol en el sistema circulatorio y en el sistema pulmonar. Bajando a tus pulmones, tienes bifurcaciones ramificándose como locas, de modo que el número de extremos de alvéolos, creo que son... no sé, no me acuerdo, pero tu sistema pulmonar baja por la tráquea y luego se divide, se divide y se divide hasta que tienes algo que se aproxima a un número infinito de terminaciones donde se puede hacer el intercambio de oxígeno, un número infinito de ellas, muy cerca de eso, ocupando una cantidad infinitamente pequeña de espacio y cabiendo dentro de tus pulmones.
¿Cómo se hace una bifurcación? Otra vez, puedes verlo en los árboles. Los árboles se ramifican por definición. Ellos fueron los que empezaron todo esto. ¿Y en qué acaba un árbol?
¿Qué quiere un árbol de su vida? Quiere tener muchas hojas en las puntas de aquí, porque ahí recibe luz solar y hace la fotosíntesis. Y un patrón de ramificación que se repite una y otra vez, iterando y bifurcando sin parar, permite a un árbol empezar a acercarse al infinito, que es tener una cobertura de hojas infinitamente completa para hacer la fotosíntesis aquí, gastando una cantidad muy finita de dinero en madera, en troncos, en ramas, todo eso.
Y luego, por supuesto, lo que ves es lo mismo en las neuronas. Lo mismo que vemos cuando el axón sale de una neurona y se divide, y bifurca, y bifurca, y bifurca, y llega a unas 50.000 terminaciones axónicas. O tienes la misma cosa de bifurcación en el extremo dendrítico, con las ramas dendríticas.
Lo mismo, que es una neurona. Vale, no puede hablar con un número infinito de otras neuronas, pero puede hablar con 50.000, lo cual es impresionante de narices. Tiene una capacidad enorme de hablar con otros componentes ocupando una cantidad de espacio muy pequeña y finita, porque hay otros 80.000 millones de neuronas haciendo lo mismo.
Por qué no hay un gen por bifurcación
¿Cómo lo haces? Con esta división repetida que no tiene escala, ramificando, todo eso. Y la otra cosa que resuelven, si lo piensas, es lo siguiente: si este es el axón de una neurona que sale de aquí, por ejemplo, ¿cómo codificas esto?
Y tienes una solución obvia que no funciona. ¿Cómo lo codificas de esta manera? Tienes un gen que dice «justo por aquí, divide». Y otro gen distinto que dice «justo por aquí, divide». Y otro gen distinto que dice «justo por aquí, divide». Y lo que ves es que, si una neurona habla con otras 50.000, eso significa que necesitarías unos 49.999 genes distintos para especificar cada uno de los eventos de bifurcación.
Y no tenemos tantos genes. Solo tenemos unos 20.000, más o menos. Y luego necesitarías otros tantos para el sistema de capilares y el pulmonar. Totalmente imposible. No puedes codificar esto punto por punto, porque te quedas sin cosas que puedan dar instrucciones. No hay genes suficientes para hacerlo.
Tienes que llegar a algo que no tenga escala, a una solución fractal. Tienes que llegar a una solución que no preste ninguna atención a la escala y que en cambio tenga unas propiedades internamente coherentes. Vale, ¿de qué estoy hablando aquí?
La regla del tubo: cuatro veces la anchura y dividir
Mira este magnífico dibujo que he hecho. Lo que tenemos es el tronco. El tronco de un sistema bifurcante. Son vasos sanguíneos. Son pulmonares o lo que sea. Es un árbol. Es una neurona. Lo que sea. Y ves aquí que hace esto, y luego se ramifica, y se ramifica en tres colores distintos. Y está muy bien.
Y te darás cuenta de algo que se mantiene aquí, y es que parece haber una regla. La regla es la siguiente: si este tronco, si este tubo, si este lumen (la jerga para esto), si este tubo mide X unidades de diámetro, la regla es que creces cuatro veces eso y entonces te divides. Y como resultado de la bifurcación, el diámetro de cada una de estas es la mitad de X.
Y creces cuatro veces eso, 2X, y luego te divides. Y ahora esto mide un cuarto de X de ancho. Y creces una distancia de 1X. Y simplemente haces esto una y otra vez y acabas de llegar a una regla, a una instrucción que, uno, no requiere 49.000 versiones distintas de la regla y, lo más importante, se puede aplicar sin escala.
Ya estemos hablando de algo de este tamaño o de algo de ese tamaño, da igual: la misma regla, que la longitud sea cuatro veces la anchura, y entonces te divides. Y eso es... y lo que es totalmente asombroso es que la gente está empezando a encontrar el puñadito de genes que codifican la bifurcación en la ramificación axónica, en el sistema pulmonar y en el circulatorio.
Y son los mismos genes, las mismas moléculas. Has evolucionado esta regla del «¿cuándo bifurco?» con genes que codifican proteínas que la llevan a cabo sin escala. Cuando el sistema circulatorio se está desarrollando, usa algunos de los mismos genes de la regla «¿cuándo bifurco?», genes fractales. Y lo que tienes ahí es que también se pone en juego en las neuronas, que son una millonésima parte de tamaño, porque esto es una célula y esto son miles de millones de células.
Y, madre mía, es totalmente elegante. Puedes conseguir estructuras que se aproximan a lo imposible en la geometría tradicional pero que son perfectas en un mundo de geometría fractal. Tienes sistemas circulatorios que están en todas partes y no ocupan espacio. Tienes árboles axónicos que podrían hablar con un número infinitamente grande de neuronas. Vale, solo 50.000, pero sin ocupar demasiado espacio.
Tienes árboles que pueden tener una cantidad enorme de cobertura de hojas sin gastar una fortuna en hacer crecer un número gigantesco de troncos gruesos. Así que, para empezar, acabas de hacer esta cosa magnífica y fisiológicamente maravillosa de estar en todas partes sin ocupar espacio, en sus distintas versiones. Y puedes llegar a reglas simples que lo hagan sin escala.
Ambiente, diferencias individuales y mutaciones fractales
Solo usa esta regla y hazlo una y otra vez, ya estés tratando neuronas, árboles, vasculatura o lo que sea. Y es una manera estupenda de codificar todo esto. Entonces, ¿qué entra en juego aquí?
¿Qué está pasando aquí? Para empezar, lo que ves es que, obviamente, no siempre va a ser exactamente la misma proporción. Por ejemplo, puedes tener una regla según la cual, vale, cuando estás desarrollando tu sistema pulmonar, creces cuatro veces la longitud. La longitud es cuatro veces la anchura, y luego te divides y usas esta regla.
Pero supongamos que creces en altitud, con niveles bajos de oxígeno. Necesitas más terminaciones en tu sistema pulmonar para hacer más intercambio de oxígeno. ¿Y qué pasa al principio de la vida? Quizá tengas algún tipo de efecto epigenético sobre estas reglas genéticas. Así que ahora la longitud debería ser 3,9 veces la anchura, lo que significa que vas a tener unas cuantas bifurcaciones más y, por tanto, unas cuantas duplicaciones más del número de terminaciones.
Y empezamos a ver cómo el ambiente puede cambiar esto. Podemos empezar a ver cómo los individuos difieren en cuál puede ser esta regla concreta. Y como resultado de tu variante genética, tienes ramas axónicas más gruesas. Tienes más neuronas con las que hablas de media que otra persona con... y empezamos a ver dónde entran las diferencias individuales y dónde entra la regulación ambiental.
Y lo único que tienes que hacer es trastear sutilmente con algunos de estos parámetros y dejar que se despliegue escala tras escala tras escala, y obtienes una modificación adaptativa de estos sistemas ramificados. Ahora bien, lo que eso plantea es esta noción interesantísima: bueno, si podemos pensar en esto como genes fractales que dan instrucciones sin escala, ¿se pueden ver mutaciones fractales?
Y creo que hay algunas que de verdad contarían como eso, de maneras muy sutiles. Así que tienes la membrana de esta neurona, de esta neurona en desarrollo, y en la membrana quieres desarrollar todo un sistema de ramificación axónica. Tienes aquí las dos capas de la membrana.
Y aquí en rojo tienes la cosa del crecimiento. La cosa del crecimiento, no sé cómo funciona, qué tipo de proteínas codifica, si viene de la genética, pero tienes la cosa del crecimiento. Y la regla aquí es que esto hace que la membrana empiece a abombarse, a formar el tronco del axón. Pero ahí tiene que haber una regla, que es que, cuando alcanza cierta proporción de altura respecto a la anchura, cuando llega a cierto punto, tiene que ocurrir una bifurcación.
¿Cómo se hace eso en un sistema así? Esto es lo que programas: la membrana interna crece un poco más rápido que la externa. Eso significa que en algún momento la membrana interna va a pellizcarse justo en este punto y va a partir en dos la cosa roja del crecimiento. Y ahora, maravillosamente, lo que pasa es que empiezas a hacer crecer ramas ahí que van a la mitad de longitud, porque tienes la mitad de la cosa del crecimiento.
Y, una vez más, la membrana interna crece más rápido, de modo que en algún punto, manteniendo una proporción dada, se pellizcan con la membrana externa y esto se parte en dos. Y luego haces esto, y luego haces esto, y así es exactamente como lo harías. Tienes alguna cosa de factor de crecimiento, y lo único que necesitas es que con cada bifurcación haya la mitad de la potencia de crecimiento dentro.
Robin Hiesinger y Paul Green: contar reglas, no moléculas
Así que vas obteniendo ramas cada vez más cortas. Y lo programas haciendo que la membrana interna crezca más rápido que la externa. Así que va a pellizcar cosas y a partirlas en dos en distintos puntos. Me encanta este modelo. Es elegantísimo. Es preciosísimo en ese sentido. En cuanto a cómo se puede hacer, hay un tipo en la Universidad de Heidelberg llamado Robin Hiesinger que investiga cosas como esta sobre el desarrollo del cerebro.
Y en lugar de clonar cosas, se parece a ese tipo, Paul Green, del que hablé el otro día con las patatas fritas. Lo que mira es: ¿cuántas reglas necesitas para llegar a un árbol axónico?
¿Cuántas reglas? ¿Cuántas reglas hacen falta, en teoría, para hacer funcionar sistemas como estos? Y lo que la gente empieza a ver ahora es que están identificando el puñado de genes, un número diminuto de ellos, que podrían generar sistemas reiterativos como estos, que bifurcan, bifurcan una y otra vez. Genes, por ejemplo, que hacen que la capa interna crezca más rápido que la externa y garantizan que esto va a ocurrir.
Y genes, solo un puñado de ellos, que hacen lo mismo en las neuronas, en el sistema pulmonar en desarrollo y en el circulatorio, porque estos no son genes para el desarrollo de árboles axónicos. No son genes para el desarrollo del sistema circulatorio. Son genes para sistemas que bifurcan sin escala, lo cual es totalmente fantástico.
Me encanta. Y ejecutas esto y obtienes estas soluciones casi imposibles. Acabas teniendo axones que hablan con un número imposiblemente grande de otras neuronas sin tener que consumir demasiado espacio axónico. Tienes un sistema circulatorio que está en todas partes y ocupa algo que se aproxima a no ocupar nada, y maneras preciosas de codificarlo sin escala que funcionarán lo mismo si esto es un árbol en desarrollo, una neurona en desarrollo o cualquier cosa intermedia: instrucciones que no tienen escala.
Vale. Así que eso está muy bien. Este es nuestro mundo del poder que se obtiene de bifurcar, bifurcar, trifurcar, lo que sea. Y el componente crítico ahí es que se puede ver cómo las diferencias individuales y los genes se despliegan en estas cosas, y se puede ver cómo el ambiente se despliega. Y naces en altitud y tendrás aquí algo epigenético que hará que tu sistema pulmonar sea más frondoso, para que puedas hacer un intercambio de oxígeno más eficiente.
La coliflor romanesca
Así que este es otro dominio completo. En el material de la clase hay una foto de una coliflor romanesca, que creo que, aunque parece un brócoli, al parecer es coliflor, y es la cosa más elegante del mundo. Y sal a comprar una y abandona de inmediato cualquier plan de comértela, porque solo vas a querer mirar su rica complejidad de fractal, lo que sea que está bifurcando una y otra vez.
Sin plano: la ciudad que se diseña sola
Y la gente ha aislado ya dos genes en esta planta que generan el patrón de bifurcación sin escala. Y donde podemos apreciar esto es mirando el urbanismo. Estás construyendo una ciudad modelo, y tú y todo tu comité de urbanistas os reunís cada quince días durante años y vais diseñando cosas.
Y al final llegas al punto de decidir dónde vamos a poner las tiendas. ¿Dónde podríamos poner las tiendas de esta ciudad nueva? Y a alguien se le ocurre una recomendación completamente inútil: «Ah, pues las repartimos al azar por todas partes». Vale, eso no va a funcionar, porque cuando la gente va de compras a una tienda, quiere que esté cerca de otras tiendas para ser más eficiente.
No puedes limitarte a repartirlas. Así que la persona, escarmentada, se va y vuelve la semana siguiente diciendo: «Ajá, vale, ya tengo la solución. En el centro de la ciudad va a haber un único megacentro comercial con absolutamente todas las tiendas de la ciudad ahí mismo». Y le dicen: «Ya sabes, eso está bien.
Acabamos de resolver el problema de que las cosas estén repartidas al azar. Están situadas de manera más eficiente. Pero tenemos un problema, y es que eso va a crear un coágulo tan denso de tiendas ahí que no solo vamos a tener problemas terribles de aparcamiento por el asunto del perímetro, sino que las tiendas del centro mismo van a asfixiarse.
Van a estar tan metidas hacia dentro, y es tan incómodo llegar atravesando todas las demás tiendas, que no van a hacer ningún negocio. Están condenadas a cerrar». Vale, eso no puedes hacerlo. No puedes tener todas... Así que la persona se va escarmentada y vuelve la semana siguiente diciendo: «Vale, esto es lo que se me ha ocurrido ahora.
En lugar de un montón de tiendas distribuidas al azar, o de todas juntas, aquí tienes seis centros comerciales distintos». Y la gente dice: «Vaya, vale, ahora vamos por buen camino», hasta que alguien se fija en algo un poco peliagudo, y es: «Vale, tienes seis centros comerciales distintos, y entre todos suman doce cafeterías, y el urbanista ha metido las doce en este grupo y los otros cinco no tienen ninguna». Vale, eso no va a funcionar.
No puedes ahora simplemente descentralizar y tener un montón. Tienes que prestar atención a la distribución de tiendas especializadas dentro de cada grupo. Tienes que atender a las proporciones, de modo que cada uno de estos tenga al menos una o dos cafeterías. Y en cada uno de estos tienes que empezar a atender a las proporciones de las partes que lo componen.
Así que la persona se va y vuelve con esto resuelto. Y vale, ahora tienen dos cafeterías en cada uno, y tienen tres parrillas mongolas en el... y todo está repartido de manera uniforme. Es perfecto. Y el comité dice: «Eso también es maravilloso. Pero hay una cosa más: dentro de estos grupos, algunas ubicaciones son problemáticas.
Mira, por ejemplo: pones el bar aquí, justo al lado de la iglesia. Nadie va a entrar en un bar si ve la iglesia al lado. Se van a sentir demasiado culpables y depravados y todo eso. No pueden estar pegados el uno al otro. Y aquí va algo útil: quizá deberías poner la biblioteca, o la librería, justo al lado de la óptica.
La gente está leyendo, leyendo. Esas tienden a venir juntas. Y hagas lo que hagas, no pongas la heladería justo al lado del gimnasio, porque van a entrar en la heladería diciendo: «Ay, no debería estar mirando a toda esta gente en forma entrenando». No puedes tener esas dos juntas.
Y hagas lo que hagas, no pongas la tienda de sudaderas que vende sudaderas que dicen «Dios bendiga a América» al lado de la que dice «Dios bendiga a América». Vale, así que tienes que atender a la distribución dentro de cada uno de estos grupos. Y en ese punto lo resuelves, y es totalmente estupendo, y todo el mundo cobra su sueldo por esta junta de desarrollo y sale a celebrarlo.
Y podrías haber hecho todo esto de forma emergente en lugar de así. Y lo que ves en el diagrama del material es exactamente cómo hace esto el sistema nervioso, y acaba con grupos de centros comerciales conectados por grandes avenidas. Y miras dentro de cada uno de estos centros comerciales y tiene exactamente las características que acabamos de conseguir a base de esfuerzo.
Cómo lo hace el sistema nervioso: atracción, hipoxia y repulsión
Tienes proporciones. Quiero decir, no tienes todo de este tipo de célula en este y nada en el otro. Aciertas con las proporciones. Aciertas con las adyacencias, todo eso. ¿Cómo se hace esto en el sistema nervioso?
Pues así, con esta apasionante serie de fotografías en time-lapse. Vale. Estás estudiando neuronas en una placa de petri. Y lo que haces es sacarlas de un cerebro, con todos esos pasos que las convierten en estas pequeñas esferas redondas de neuronas bebés fetales que ahora tienen el potencial de crecer hacia fuera.
Así que sueltas un montón de ellas, y quedan repartidas al azar por toda la placa, justo como aquella primera solución idiota de «vamos a repartir las tiendas al azar por toda la ciudad». Hay una regla simple: cada una de estas neuronas bebés segrega un factor atrayente que tiende a tirar de otras neuronas hacia ella.
Y así, lo que vas a ver es: ¿dónde tenemos un ejemplo de dos que por puro azar han quedado cerca la una de la otra? Su atracción mutua va a hacer que se junten, que formen un grupo de dos, que ahora tiene el doble de poder de atracción.
Y lo mismo está pasando con todas las demás. Y pronto lo que tendrás es un montón de grupos así, simplemente por las reglas de atracción. En principio, ahora puedes meterte en problemas, porque si dices «bueno, todas se atraen entre sí», todas van a convertirse en un único coágulo gigantesco de células apiñadas, o cada grupo individual se va a hacer enorme.
Y tenemos otra vez el mismo problema de «vamos a poner un solo centro comercial en el centro». Ahí tienes exactamente el mismo problema, que es que, conforme más y más células se suman a cada grupo, las células del centro mismo (en rojo) empiezan a quedarse sin oxígeno. Se vuelven hipóxicas porque están sofocadas ahí en medio.
Y lo único que hace falta es que las neuronas hipóxicas emitan una molécula que contrarreste las moléculas atrayentes. Deja de reclutar miembros nuevos, y se detiene. No se hace más grande que esto, porque las neuronas del centro mismo se están asfixiando y envían una señal: «Hasta aquí llegamos». Lo único que necesitas es segregar una molécula que neutralice la molécula atrayente.
Vale, así que has llegado a este punto. ¿Qué es lo siguiente? En cuanto aparece ahí la molécula de «no crezcas más», tiene una segunda función: empuja a estas neuronas a empezar a hacer crecer proyecciones. Proyecciones hacia la neurona más cercana posible. Y cada uno de estos grupos se cablea en ese punto. Y siguiendo reglas iguales a las de las hormigas del viajante: simplemente proyecta hacia la neurona más cercana.
Que cada uno vaya a la neurona que le quede más cerca. Y pronto tienes grupos como estos. Y en cuanto alcanzas cierta densidad de cableado local, eso genera un factor que inhibe la señal de cableado local y enciende una señal de larga distancia. Y ahora, de repente, estos grupos de neuronas muy cableadas aquí dentro empiezan a enviar proyecciones de larga distancia, vagando en todas las direcciones posibles, mientras a la vez cada uno de estos grupos está liberando una molécula de atracción.
Y, por definición, eso forma un gradiente alrededor de la parte más interna de este grupo. Este grupo interconectado es la concentración más espesa de esta sustancia atrayente. Y conforme te alejas hay un poco menos y un poco menos. Y hay un gradiente. Y tú crecías en esta dirección. Ya está montado. Así que no prestas atención a tu propio gradiente —no...—, pero captas el primer atisbo de uno de esos y creces hacia él.
Y luego hay una señal aún más fuerte, y más fuerte, y más fuerte, y empiezas a cablear. Y las que se van en alguna dirección completamente inútil son podadas por falta de conectividad, y acabas con algo parecido a un urbanismo con distintos centros comerciales aquí y grandes avenidas que los conectan.
Y todo con lo que empezaste era un montón de neuronas bebés simples y pequeñas, todavía sin proyecciones, ninguna de las cuales conocía a las otras. Todas son desconocidas entre sí. Reglas muy simples. Las echas juntas, vuelves un rato después y han llegado a una optimización del agrupamiento de funciones, conectando con la menor cantidad posible de dinero gastado en axones.
Estabas haciendo una solución de viajante. Así que haces eso y eso acaba haciéndolo por ti. Y con lo que has hecho esto es ahora nuestro tercer motivo. El primero: una generación fundadora que difunde más fuerte cuando algo es mejor, y una segunda generación vagabunda. Nuestro motivo siguiente: la manera de bifurcar sin escala para conseguir cosas casi imposiblemente eficientes en un espacio finito, en espacios finitos.
El tercer motivo, que acabamos de ver al construir esta pequeña ciudad sin urbanistas: montar grupos neuronales (núcleos, los inicios de núcleos) y proyecciones entre distintas partes del cerebro, montarlo con reglas simples de señales de atracción y señales de repulsión. Señales de atracción que las juntan en primer lugar, señales de repulsión.
En cuanto este grupo cercano queda cableado entre sí, empieza a producir una señal repulsiva, de modo que cualquier axón nuevo que empiece a crecer aquí es repelido y crece en esta dirección. Solo alternando entre cargas positivas de atracción y cargas negativas de repulsión sacas toda clase de soluciones optimizadas.
Y este es todo el mundo de las moléculas con carga positiva y negativa que encuentran la conformación menos exigente desde el punto de vista energético. Es el mundo de unas moléculas que se sienten atraídas por el agua y otras que son repelidas por ella, hidrófobas, hidrófilas. Es todo un mundo de complejidad, de patrones emergentes que puedes obtener solo con un par de reglas: «vale, pasemos de la retroalimentación negativa a la positiva un rato», «vale, pasemos de atraer a un terminal axónico en crecimiento a repelerlo». Y con eso incluso puedes empezar a hacer cosas como: aquí hay tres puestos avanzados, y este grupo de neuronas quiere enviar una proyección de larga distancia hacia allí. Y vamos a ver en breve las ventajas de algunas de larga distancia, que están tan lejos que no podría estar captando el gradiente de esta, pero capta el de aquella.
Así que empieza a crecer hacia ella. Y lo único que tienes que programar en el sistema es que, en cuanto llegue así de cerca, este grupo empiece a segregar una señal repelente en lugar de una atrayente. Y así esta sigue y sale volando más allá, hacia donde tienes un poste indicador que hace un sobrevuelo. Y resulta que ahí está funcionando este otro motivo, según el cual, cuando se acerca, si quieres que te pase de largo, cambias de golpe de atrayente a repelente.
Este es parte del trabajo clásico, del trabajo molecular y bioquímico real hecho al principio de su carrera por Mark Tessier-Lavigne, mirando cómo cableas sistemas nerviosos con señales atrayentes y señales repelentes. Y basta con un número pequeño de ellas, y de repente tienes cosas cableadas de forma tan adaptativa como lo que un montón de urbanistas podrían conseguir tras un año de reuniones.
El pueblo del río: la regla del 80/20
Así que aquí estás viviendo en una circunstancia muy extraña. Vives en un pueblo junto a un río. El pueblo tiene 101 casas. Y a lo largo del río las casas están todas en línea recta: la casa número uno hasta la casa número 101. Y este es el pueblo en el que vives.
Da la casualidad de que vives en la casa número uno. Y tienes una elección: ¿con cuáles de tus vecinos interactúas? Empezando por la casa número uno, justo a tu lado, hasta la casa número 100, la más lejana. ¿Con qué vecinos interactúas?
Y hay un montón de maneras o soluciones distintas de plantearlo. Puedes llegar a la regla de que solo interactúas con tu vecino más próximo, o solo con tu vecino más lejano, o que lo repartes al azar, o que interactúas lo mismo con todos los vecinos, o que llegas a una distribución normal de interacciones en la que lo haces con muchísima más frecuencia con el número 50 y cada vez menos en ambas direcciones.
Pero luego hay otra manera posible de distribuir tus interacciones que produce una curva como esta. En realidad no llega más allá, porque solo hay 100 casas, pero me entusiasmé con el rotulador. Llegas a... ¿cómo podemos describir este tipo de patrón en castellano?
La mayoría de las conexiones son muy locales, pero sigues haciendo conexiones de larga distancia, solo que cuanto más lejos está, más rara es la interacción. Así que esto va asintóticamente hacia abajo, cada vez menos frecuente, aunque parezca que está horizontal. Pero la mayoría de tus interacciones son locales, y tienes un subconjunto que son a distancia, y cuanto más distantes, más raras, pero sigues teniendo esas interacciones ahí.
Y esto acaba llamándose una distribución de ley de potencias o distribución de Pareto. Los economistas juegan con esto, todo eso. Y esto se resume en una especie de inglés cotidiano en algo que probablemente mucha gente conoce: lo que se llama, con retintín, la regla del 80/20. La regla del 80/20. ¿Cómo se ve la regla del 80/20 en los negocios?
Alguien se sienta y revisa sus registros y llega a: «Madre mía, ¿sabes qué? El 80 % de las quejas que recibo de clientes se deben al 20 % de los clientes. Es el 20 % el que hace el 80 % de las quejas». Y luego vas a mirar mis estadísticas de delincuencia, y el 20 % de los delincuentes cometen el 80 % de los delitos.
O luego miras otra versión. Miras una empresa y el 20 % de la gente produce el 80 % de... no siempre es 80/20, pero estás viendo una manera de decir que un subconjunto pequeño produce la mayor parte de lo que pasa. Y en los primeros seis meses de la COVID viste exactamente la misma regla del 80/20: el 20 % de los infectados se llevaban el 80 % de la propagación, con los idiotas supercontagiadores de fiestas COVID y esas cosas.
Delfines, peces y microglía: el 80/20 en el mundo social
Y lo que vemos es que todas estas son versiones de la regla del 80/20: en su mayor parte tienes un grupo local, pero tienes eventos raros y cada vez más raros en la periferia. Y esto acaba apareciendo en toda clase de mundos sociales. Delfines. Delfines. Tienes grupos de delfines que tienen familias. Y miras las interacciones dentro de las familias: ¿con qué frecuencia interactúa un delfín con un pariente cercano frente a un delfín no emparentado?
Y en torno al 80 % de las interacciones son dentro de la familia y el 20 % fuera. Haces este tipo de estudio tan raro con cierto tipo de pez depredador, y miras cómo se las arregla para cazar. Y empieza en este punto y va y busca algo allí. Y si no encuentra algo, busca en otro sitio.
Y luego va y mira, y mides la longitud de cada uno de estos trayectos, y ves algo que se aproxima a una distribución 80/20: el 80 % de las incursiones, el 80 % de los viajes, son alrededor del 20 % de la longitud máxima a la que llegas. Lo mismo. Y ves que eso puede cambiar bajo una circunstancia muy interesante (que no vamos a tratar).
Vaya, eso es asombroso. Ahora mira las células inmunitarias. Mira las células inmunitarias de tu sistema nervioso que salen a buscar patógenos invasores. Y células inmunitarias, la microglía, en la superficie de tu cerebro. Exploran por aquí a ver si hay algo patógeno, y luego exploran por aquí y por allá. ¿Hasta dónde van de caza antes de pasar a un objetivo nuevo?
Otra vez, una distribución de ley de potencias. En torno al 80 % de las cacerías de estas células inmunitarias ocurren dentro del 20 % de la distancia máxima a la que pueden llegar. La gente discute si las leyes de potencias surgen con algún tipo de inevitabilidad. Probablemente no, porque no ves esta distribución en toda clase de sistemas complicados; más bien ves esto, lo que sugiere que hay selección a favor de ella.
La corteza como red: lo local y lo de largo alcance
Hay algo adaptativo en una distribución así. Así que veamos qué puede tener de adaptativo en el sistema nervioso. Vamos a la corteza: tienes la corteza del hemisferio izquierdo y la del derecho, todo eso, y un montón de neuronas ahí dentro. Y cada neurona tiene que decidir: ¿qué longitud de proyección va a enviar para conectarse con otra neurona, una cosa de tipo bifurcación?
¿Va a tener sobre todo conexiones locales, reduciendo drásticamente aquello? ¿Va a tener sobre todo pequeñas conexiones locales aquí dentro? ¿Va a tener conexiones de larga distancia? Y miras la corteza y miras la longitud media de las proyecciones axónicas en toda la corteza. Y miras la distribución y forma una distribución de ley de potencias, es decir, más o menos el 80 % de las neuronas corticales interactúan de forma muy local, pero luego hay algunas que son de larga distancia y, aún más raras, hay algunas que son de larga distancia larguísima.
Una de las proyecciones más largas que puede hacer una neurona cortical. Tienes una neurona aquí sentada que envía una proyección al otro hemisferio a través de esta banda de axones que conecta los dos hemisferios, llamada cuerpo calloso. Están enviando proyecciones larguísimas. No hay tantas neuronas haciendo eso. El 80 % de las interacciones, de las proyecciones, están dentro de aproximadamente el 20 % de la distancia de la proyección máxima que vas a ver nunca.
Otra vez, no es exactamente 80/20, pero emerge algo con una distribución de ley de potencias así. Entonces, ¿por qué eso es bueno? ¿Qué tiene de adaptativo? Y aquí es donde entran los científicos de redes. Y lo que muestran es que las distribuciones de ley de potencias tienen varias características muy útiles en las redes. La mayoría de tus interacciones son locales, con otros nodos afines de la red, con otras neuronas afines que están en la misma subparte de la corteza.
¿Qué consigue tener sobre todo grupos de interacciones locales? Pasas la mayor parte del tiempo con neuronas afines, con las mismas especializaciones, resolviendo problemas muy familiares que se presentan, los que son conocidos y fáciles. Y esto es lo que hacemos todo el rato, y tenemos perfectamente resuelto cómo hacerlo con eficacia.
¿Por qué tener tantas conexiones locales ahí? El 80 %. Ves otra ventaja: algunas de estas neuronas pueden morir por un accidente y todavía quedan suficientes conexiones como para que puedas seguir haciendo con eficacia tus tareas más habituales. En otras palabras, es un grupo robusto. Es resistente frente a una lesión que pueda arrasar con esta o aquella neurona.
Y eso es perfecto. Es una manera de resolver la mayoría de tus desafíos, los que llegan con más frecuencia, los familiares, con tu gente y contigo. Y todos tenéis el mismo apretón de manos secreto. Y si unos cuantos se caen del equipo, no pasa nada. Y luego, de vez en cuando, llega un problema que tú, pequeño grupo afín de ahí, no tienes ni idea de cómo resolver, porque nunca habías visto ese problema.
Y ahí más te vale rezar para tener algunas de estas proyecciones de larga distancia que te conecten con otros grupos e innovar. Así que ves estos grupos altamente especializados, ideales para resolver problemas familiares y aguantar lesiones. Y luego tienes proyecciones de larga distancia, ideales para conectar con generalistas que llegan a soluciones completamente distintas, porque «vaya, nunca lo había pensado así» cuando se enfrentan a un desafío nuevo.
Y lo que hace una distribución de ley de potencias en la corteza, resulta, es optimizarla. Esta distribución de aproximadamente 80/20 es la más resistente a las lesiones locales y la que más favorece las interacciones locales, y a la vez permite alcanzar la frecuencia de proyecciones largas necesaria para resolver algunos problemas nuevos.
Y ves exactamente eso. Coges cualquier núcleo o grupo de neuronas dentro de la corteza, y ¿cuál es la distancia media de todas las proyecciones que salen, y la rarísima larga que habla con el otro lado? Y esta es la que optimiza la resolución de problemas entre los familiares y cotidianos y los raros y nuevos. Y la corteza es brillante en esto.
Y fíjate en que, con este diagrama calibrado con cuidado, en este hay un agrupamiento de proyecciones locales más grueso que en este. Y esto está dibujado más fino que esto. Y tienes más local. Así que en lugar de 80/20 tienes 81/19, tienes 85/15, tienes 90/10, o lo que sea. Tienes una tendencia hacia un agrupamiento más local.
¿Y qué va a hacer eso? Va a producir una corteza mejor, más eficiente, más rápida y más resistente a las lesiones para las tareas locales familiares, pero menos capaz de hacer cosas integradoras, holísticas, de conectar con otras regiones de ahí y llegar a soluciones nuevas. Entonces, ¿cuándo ves que esta distribución cortical de ley de potencias se inclina hacia un agrupamiento más local?
Los machos: más agrupamiento local
Hay un tipo de organismo en el que ves esto: los machos. Los machos. En los machos, la distribución de las proyecciones corticales está sesgada hacia la izquierda: más agrupamiento local. Y puedes verlo, y la distribución de proyecciones de ahí. Puedes verlo. Por ejemplo, hay proyecciones muy raras que van de este lado hasta el otro lado, las que están allá en la cola, a través del cuerpo calloso.
De media, el cuerpo calloso es más fino en los machos que en las hembras. Hay menos cosas de proyección de larga distancia que integren para resolver holísticamente un problema nuevo. ¿Y qué ves? Ves una capacidad mejorada para tener islas aisladas de pericia, pero menos capacidad de integrarlas. Y haces todo un mundo de diferencias sexuales y neuropsicología, y resulta precisamente que los machos son mejores, de media, en problemas locales y analíticos, una vez que controlas por la cultura.
Las hembras son mejores en interacciones integradoras, holísticas, transaccionales dentro de la corteza. Así que ves ahí una diferencia sexual. Hay algo con las hormonas, con qué cromosomas tienes, los cromosomas sexuales, lo que sea, que cambiará sutilmente alguna regla de proporción para que este sea el perfil femenino y este el perfil masculino. De media, no puedes saber el sexo de alguien mirando cómo es su distribución de ley de potencias en la corteza.
La misma inclinación en el espectro autista
Pero de media, los machos tienden más a un agrupamiento local, a islas aisladas de función optimizada con menos interconexiones con otras islas. Y la gente ha demostrado incluso que la testosterona tiene algo que ver con esto. Hay otra población de humanos en la que también ves un sesgo hacia la izquierda que produce lo mismo. Y son personas que, independientemente de cuál sea su sexo, tienen trastorno del espectro autista, personas del espectro.
Y lo que ves: hay cosas con la percepción de caras, cosas con la socialización, cosas con el procesamiento sensorial, todo eso. Hay un sesgo hacia proyecciones corticales más locales, que produce grupitos de función más intensamente agrupados y más aislados de otros, que pueden hacer menos integración entre grupos distintos. Y de qué va eso, cuál es la biología en las mujeres frente a los hombres, en las personas con TEA frente a las neurotípicas, cuál es esa biología: la gente está empezando a aclararlo.
Pero ves que a menudo hay, incluso en personas con un TEA bastante severo, ves islas aisladas de gran pericia neurobiológica que están aisladas, menos integradas. Escúchalo. Así que tenemos todo este mundo funcionando, jugando con las proporciones en el desarrollo de cosas que pasan en el cerebro. Vale. Ahora pasamos a los dos últimos dominios de cosas emergentes.
Emergencia en una uña del pie
Y los he metido porque son tan sumamente asombrosos que no me puedo resistir. El primero de todos. Vale. Aquí. Haz el siguiente experimento: aquí hay una uña del pie. Esta es una uña del pie idealizada platónicamente, que forma un rectángulo perfecto. Aquí está esta uña. Y ahora haz un experimento: entra con unas tijeras y corta la uña así.
Y luego sigue la uña durante los meses y meses siguientes. Y lo que ves es que, por toda lógica, si cada uno de estos puntos donde se hizo un corte crece ahora una cierta cantidad, la uña va a acabar pareciéndose a esto, porque cada uno de estos frentes ha crecido la misma distancia.
Y en lugar de eso, lo que ves es una solución emergente en la que de alguna manera la cosa de la uña de este extremo sabe crecer más que la cosa de la uña de ese extremo. ¿Y cómo funciona eso? Resulta que hay una solución biomecánica: que hay una densidad mayor de cosa-uña aquí. (Me lo estoy inventando sobre la marcha.) Tu uña, como la parte de arriba de la uña es más gruesa porque no dejas de golpearla contra cosas como los calcetines y las piedras y esas cosas.
Así que esto es más grueso, y por tanto, conforme esto crece hacia ahí, hay más impedimento espacial, lo que se traduce en más impedimento espacial cuando esta parte llega hasta allí y esta otra. Me lo estoy inventando, pero tiene que ser algo así. Y así es como tienes esta emergencia. No hay ningún trocito de uña ahí que diga: «Ajá, como estoy aquí, tengo que crecer un poco más que este de mi izquierda, pero que la molécula de mi derecha, un poco menos». Así que no hay reglas de ese tipo.
Simplemente emerge de una propiedad de cómo resultan ser las partes de arriba de las uñas. Son romas y tienen más inercia mecánica, y acabas con esto. ¿Por qué es tan elegante?
¿Por qué lo veo como la cosa emergente más asombrosa de todas? Porque hace unos diez años recibí un correo de un ingeniero jubilado de 82 años que vivía en Bombay y que acababa de hacer ese experimento con una de sus uñas del pie y había tomado fotos cada semana que pasaba y me las había enviado para que viera cómo se desplegaba.
Organoides cerebrales: neuronas que construyen un cerebro
Y me hizo tanta ilusión que lo hiciera. Así que ese es otro terreno de emergencia, la de las uñas. Pero luego está la emergencia que de verdad te deja clavado en el sitio. El último ejemplo que ves en el material: los organoides, fotografías de organoides cerebrales. ¿Qué se hace aquí?
Volvemos... Coges un montón de neuronas bebés pequeñas, todavía sin conexiones, y las tiras sobre una placa, una placa de petri, una alfombra, y forman una alfombra, y luego empiezan a hacer toda esa cosa, de modo que antes de que te des cuenta tienes esto saliendo por el otro lado. Lo que se hace con los organoides cerebrales es coger esas mismas neuronas bebés que todavía no tienen proyecciones y, en lugar de tirarlas sobre una alfombra, suspenderlas en una solución, en tres dimensiones.
¿Y qué pasa entonces? Exactamente el proceso por el que pasamos ahí con el motivo de los centros comerciales. Empiezan a atraerse entre sí y empiezan a agruparse. Y una vez se agrupan, empiezan a diferenciarse de maneras especializadas. Y lo asombroso de estos organoides cerebrales (en la foto que tienes ahí, estos son microscópicos) es que se juntan.
Se autoensamblan, empiezan a autoensamblarse y forman cosas que parecen, ah, está al otro lado, que parecen los inicios de capas corticales fetales. Estas neuronas bebés diminutas, que nunca se habían visto entre sí, todas de alguna manera emergente, con reglas simples de interacción local, empiezan a juntarse para formar un cerebro. Construyen un cerebro por su cuenta.
Y en este punto la gente se queda de verdad clavada en el sitio, porque ves cosas asombrosas. No solo empiezas a ver los inicios de una corteza primitiva, primitiva, autoensamblándose, sino que un grupo ha demostrado ahora que, conforme empieza a autoensamblarse, salen de ahí ondas cerebrales muy primitivas, como las que ves en el sistema nervioso de un feto del primer trimestre.
Y la gente anda ahora trasteando y haciendo cosas como: haz estos organoides cerebrales, pero mételes un gen neandertal y mira qué pasa. O conecta tu organoide a un organoide muscular y mira si pueden dirigirse mutuamente para contraerse con órdenes de este. O pégalo a un robot. Y asombroso.
Y: «Madre mía, ¿estamos haciendo una miniconciencia ahí?». El consenso en el campo es que esto está lejísimos de cualquier cosa que se le parezca. Pero aun así ya hay comités de bioética que están empezando a averiguar cómo sabríamos si hay un organoide cerebral que en algún momento se ha vuelto consciente.
Vaya. Piensa en eso esta noche. Pero, lo más asombroso para lo que nos interesa, es una autoorganización tridimensional que abarca cada una de estas reglas y motivos que hemos visto aquí, empezando a construir un cerebro funcional por su cuenta. Vale. Entonces, ¿cómo empezamos a entender todo esto?
Las piezas no son especiales: el genoma del chimpancé
Para empezar, ¿cómo lo entendemos? Esto se aplica a nosotros como especie. Hay algo muy difícil de entender en por qué nuestros cerebros son tan especiales, porque las piezas de las que están hechos no son nada especiales. Miras una neurona de una mosca de la fruta y miras una nuestra, y todas tienen cuerpos celulares, y ambas tienen axones, y ambas tienen potenciales de acción, y ambas tienen prácticamente los mismos genes que codifican cómo hacer potenciales de acción, y son exactamente iguales.
¿Y qué nos hace distintos de la Drosophila? Desde luego no es que tengamos neuronas individuales más lujosas, que liberen neurotransmisores que nunca se ven en las moscas de la fruta, todo eso. Tenemos las mismas piezas componentes locales, idiotas y simples, con solo un número relativamente pequeño de maneras de interactuar entre las 50.000 de las 80.000 millones que hay ahí dentro.
Es solo que lo haces, y de repente salen cosas humanas que no podrías sacar de una mosca de la fruta con 100.000 neuronas, y nosotros tenemos 80.000 millones. Así que ahora vemos otra versión del mismo remate: cuando la gente obtuvo el genoma humano, cuando todos vosotros erais solo cigotos o algo así, y poco después, la gente obtuvo el genoma del chimpancé.
Y durante décadas conocimos una especie de dogma: los chimpancés y los humanos compartimos el 98 % de nuestro ADN. (Volvemos a nuestras clases de molecular sobre cómo se calcula eso.) Pero ahora por fin podíamos averiguar cuál es el 2 % del ADN que es distinto entre humanos y chimpancés, porque eso va a explicarlo todo. Y la gente fue a estudiarlo, y fue una decepción enorme.
La mitad de los genes que diferían codificaban para receptores olfativos, y los chimpancés tenían mejor olfato que nosotros. Vaya, eso no es muy interesante. Luego miras y como la mitad de los restantes tiene que ver con la función inmunitaria, y la otra mitad tiene que ver con si te sale pelo en los hombros o no.
Los genes que importan: cuántas rondas de división
Y había solo un puñado de genes que fueran específicos del cerebro. ¿Cómo podía ser? Y la gente fue a explorarlo. Y de lo que tienden a ir esos poquísimos genes es de cuántas rondas de división celular hacen las células madre del cerebro fetal al producir neuronas nuevas, antes de parar.
¿Cuántas rondas de una duplicación exponencial? ¿Cuántas bifurcaciones? Y las versiones de los genes que tenemos empujan hacia unas cuantas rondas más de duplicaciones que las de los cerebros de chimpancé. ¿Qué nos acaba de decir eso? Una regla muy simple: ¿cuántas rondas de bifurcaciones haces?
Y si la regla es que tienes tres o cuatro duplicaciones más en el cerebro humano que en el cerebro del chimpancé, por eso es unas tres o cuatro veces más grande. Y entonces caes de repente en la cuenta de que lo que hace que los cerebros humanos sean cerebros humanos es simplemente cosas emergentes. Si consiguieras que un cerebro de chimpancé en desarrollo diera tres o cuatro rondas más de división celular, el cerebro de chimpancé sería como el nuestro.
Sería un cerebro que tendría propiedades emergentes como poder inventar teología y estética y filosofía y sistemas económicos, y quién sabe qué teología para un cerebro de chimpancé ocho veces más grande de lo normal. Apuesto a que se parecería mucho más bien poco a la propiedad emergente de la creencia teológica que han inventado los humanos.
Lecciones: más es distinto, sin planos y con azar
¿Qué hay entre nosotros y ellos? Tenemos a nuestro favor que «más es distinto» más que los chimpancés. Y solo con que los chimpancés pasaran por unas cuantas rondas más de bifurcaciones, los chimpancés serían como los humanos. Vale, entonces, ¿qué hemos aprendido de todo esto?
Tenemos, ya sabes, las grandes lecciones de los sistemas emergentes: que puedes conseguir estas cosas complejas y adaptativas con propiedades que solo se pueden describir en el nivel emergente: mojado en el nivel emergente, teología en el nivel emergente, todo eso, a partir de piezas componentes muy simples que hacen lo mismo en nosotros que en un cerebro de mosca de la fruta.
Y consigues todo este material adaptativo y complejo sin planos previos. ¿Cuáles son algunas de las lecciones mayores que salen de esto? De esto, tanto de la emergencia como del caos, y del fracaso del reduccionismo. (Por favor, id a leer el capítulo del caos.) Lo que vemos una y otra vez es este tema del «más es distinto». Con suficiente cantidad, inventas cualidad que antes no estaba ahí.
Con suficientes neuronas de chimpancé divididas unas cuantas veces más, consigues cerebros de chimpancé que van a inventar el teatro musical o quién sabe qué. Vas a... Con suficiente cantidad, inventas cualidad. La pieza clave en cualquiera de estos sistemas emergentes, adaptativos y tan lujosos es que las piezas no tienen que ser lujosas ellas mismas.
Pueden ser idiotamente simples. Y cuando se forma algo asombroso como un cerebro, son exactamente igual de idiotamente simples que cuando eran una sola neuronita fetal. No hay nada más lujoso. Solo tienes muchos componentes simples con unas pocas reglas para interactuar con los vecinos. Y recuerda todos los distintos algoritmos que la gente envió sobre cómo optimizarías tu jugada en el dilema del prisionero, todo eso.
Fue el conjunto de reglas más simple el que batió a todos los demás: el ojo por ojo. Tenía el menor número de reglas, y es uno de esos casos en los que habría perdido cualquier batalla concreta, pero con suficientes iteraciones, con suficiente «más es distinto», emerge como la solución más óptima. Y ves la importancia de algo que normalmente despreciamos, los sistemas biológicos, y que creemos que es una cosa desordenada y ruidosa: el azar.
Lo normal es un emergente, y lo de abajo arriba
Todos esos emergentes requieren una primera generación exploradora, pero luego requieren una segunda generación haciendo cosas al azar. Los gradientes de atracción y repulsión son importantísimos. Ten muchas conexiones locales, pero no olvides las globales, porque quieres alcanzar un equilibrio óptimo entre resolver fácilmente lo familiar y tener alguna posibilidad de llegar a una solución nueva para algo nunca visto; y quieres alcanzar el equilibrio óptimo en eso.
En algún punto de todo esto aparece la noción de que lo «normal» es solo una propiedad estadísticamente emergente. No hay ninguna persona que tenga un nivel normal de altura, de inteligencia, de belleza, de afabilidad ni de nada. Lo «normal» es solo un emergente. Lo «normal» es imaginario. Todos y cada uno de nosotros nos desviamos de la norma. Por muy guays que sean los guays, por muy en el centro que parezcan estar, todos nos desviamos.
Lo «normal» es una invención emergente. Casi al final. Lo que vemos, sobre todo con las proyecciones de larga distancia dentro de nuestro mundo especializado (y sospecho que muchos de vosotros tendréis muchas rutas después de Stanford que os llevarán por caminos muy, muy especializados, de modo que veinte años después seréis uno de los seis expertos del planeta en algo o en otra cosa): en medio de eso, los generalistas son críticos para que estos sistemas emergentes sean adaptativos.
Por último, con todo este material puedes conseguir cosas organizadas, adaptativas, exitosas y maravillosamente recargadas, y todo puede ser de abajo arriba. No necesitas planos. No necesitas un autor de planos. No necesitas una autoridad ejecutiva centralizada que compare las opciones. Cosas de abajo arriba. Por eso, tanto si mirabas lo de abajo arriba en términos de reglas de cableado, como si mirabas lo de «más es distinto» lo bastante de abajo arriba, pisoteado, como los pobres campesinos o lo que sea que por fin hacen algo de abajo arriba: van a derribar a la ejecutiva de arriba absolutamente cada vez, de forma descentralizada, hacia arriba, sin un plano y sin un autor de planos.
Fin de la primera parte del curso
Vale, así que esto nos lleva oficialmente al final de la primera parte del curso. Y a partir del lunes empezaremos con nuestros comportamientos concretos, mirándolos desde lo neuronal, desde lo endocrino, desde el ambiente, desde la etología, todo eso. Mirando dónde están pasando algunas de las cosas emergentes que los atraviesan, empezando el lunes por el comportamiento sexual y el comportamiento de afiliación.
Fuentes · 29 entradas
De dónde sale cada dato de este tema
Las fuentes de estas 2 clases, cada clase en su caja. Está plegado para que no tape las clases; se abre cuando haga falta.
Emergencia · 29 fuentes
Clase 17 · Más es diferente: nubes, no relojes · 12 fuentes
- 17Tuchman, B. W. A Distant Mirror: The Calamitous 14th Century (la estimación de las 12 millas en toda una vida). Alfred A. Knopf, Nueva York 1978. enlaceEn el libro no está. Una búsqueda en el texto completo de A Distant Mirror devuelve «twelve miles» una sola vez, a propósito del ejército inglés en Poitiers, y ningún pasaje liga el radio de viaje de un campesino a 12 millas ni a su lugar de nacimiento; la clase se lo atribuye a Tuchman. La cifra del campesino que nunca viaja circula en versiones distintas y con autores distintos (la más parecida al fraseo de la clase es la de Patricia D. Netzley, que dice veinticinco millas), y los medievalistas la tratan como un mito. Queda sin resolver: no es verificable en Tuchman.
- 17Sapolsky, R. M., & Balt, S. Reductionism and Variability in Data: A Meta-Analysis. Perspectives in Biology and Medicine 39(2):193-203 1996. enlaceSe clasificaron los artículos sobre testosterona y agresión en seis niveles de análisis, de lo societal a lo subcelular y molecular, y se calculó el coeficiente de variación de cada media publicada. La variabilidad no bajó al bajar el nivel: se mantuvo más o menos constante, así que ganó la predicción de los sistemas no lineales y no la reductiva. Tres desajustes con lo que dice la clase: llama a la revista «Essays in Biology and Medicine» y la real es Perspectives in Biology and Medicine (verificado en Crossref con el DOI de arriba); presenta el trabajo como de «hace unos 25 años» cuando son unos 28; y dice que solo lo han citado dos veces y ambas equivocadas, cuando Crossref registra 13 citas.
- 17Anderson, P. W. More Is Different: Broken symmetry and the nature of the hierarchical structure of science. Science 177(4047):393-396 1972. enlaceLa hipótesis reductiva no está reñida con que en cada nivel de complejidad aparezcan leyes y conceptos nuevos: al ensamblar muchas partes surge un comportamiento que no se puede inferir de las partes. La frase y la idea son de Anderson; el lugar no. «Más es diferente» es un artículo de 1972 en Science, y su discurso del Nobel (8 de diciembre de 1977) se tituló «Local Moments and Localized States», donde no aparecen ni la frase ni el argumento de la emergencia.
- 17Engels, F. La ley de la transformación de la cantidad en cualidad (Anti-Dühring, cap. X, «Cantidad y cualidad»; Dialéctica de la naturaleza, cap. 2). Anti-Dühring (1877-78); Dialéctica de la naturaleza (inédita, publicada en 1925) 1877. enlaceLa primera ley de la dialéctica de Engels: un cambio puramente cuantitativo, acumulado más allá de un punto nodal, produce un salto cualitativo (sus ejemplos: la serie CH2 de los hidrocarburos y el agua que hierve a 100 grados). La doctrina es suya y la clase la resume bien, pero su «con suficiente cantidad, inventas una cualidad distinta» es una paráfrasis y no una cita, como él mismo deja ver con el «al parecer»; la formulación canónica de Engels es «la transformación de la cantidad en cualidad», y la ley la toma de Hegel.
- 17Green, P. B. Expression of pattern in plants: combining molecular and calculus-based biophysical paradigms. American Journal of Botany 86(8):1059-1076 1999. enlaceLa forma de la planta puede generarla el sistema mecánico (el «respondiente»): la geometría y las propiedades físicas del tejido, modeladas con cálculo, producen patrón sin una instrucción posicional para cada rasgo, que es el programa que la clase cuenta como el recuento de reglas de Green. Es lo publicado más cercano a ese planteamiento y estaba en prensa cuando Green murió (las revisiones finales las firmó Jacques Dumais, de Stanford). El resultado concreto de las tres reglas para una hoja de monocotiledónea no está aquí. De su lugar en la tradición del abombamiento dan fe Hamant y Traas, New Phytologist 2010, que lo sitúan junto a Schwendener y D'Arcy Thompson.
- 17Tinbergen, N., & Perdeck, A. C. On the stimulus situation releasing the begging response in the newly hatched herring gull chick (los modelos de pico de cartón). Behaviour 3(1):1-38 (el experimento de 1947 se publicó como Tinbergen 1948, De Levende Natuur 51:49-56) 1950. enlaceLos pollos de gaviota argéntea, sin experiencia previa, picotean modelos de la cabeza parental y la respuesta depende del contraste y la configuración de la mancha roja de la mandíbula inferior: la demostración clásica del estímulo-signo. La clase no nombra a nadie, así que la identificación es una correspondencia candidata por el paradigma. Aviso para el relato limpio del «pollo picotea el punto rojo»: los datos originales de 1947 dieron más picotazos al modelo negro, Tinbergen lo atribuyó a presentar el rojo más veces y ajustó después sus datos, y la réplica de 2009 (Ten Cate y colaboradores, Animal Behaviour) encontró que, con presentaciones iguales, gana el rojo.
- 17Hoffmann, M., Kleine-Weber, H., Schroeder, S., et al. SARS-CoV-2 Cell Entry Depends on ACE2 and TMPRSS2 and Is Blocked by a Clinically Proven Protease Inhibitor. Cell 181(2):271-280 2020. enlaceEl SARS-CoV-2 usa ACE2 como receptor y la proteasa serínica TMPRSS2 para el cebado de la proteína de la espícula, y su entrada se puede bloquear con un inhibidor de proteasa clínicamente probado. La «proteína de la cubierta» de la clase es la espícula (S) y «este receptor de las células pulmonares» es ACE2: acierta en las dos, y su «hace unos cuatro años» cuadra con una clase de 2024.
- 17Goss, S., Aron, S., Deneubourg, J.-L., & Pasteels, J.-M. Self-organized shortcuts in the Argentine ant (el experimento del puente binario con feromonas). Naturwissenschaften 76(12):579-581 1989. enlaceColonias de Iridomyrmex humilis unidas al alimento por un puente con una rama corta y otra larga eligen la corta: con ramas iguales no hay preferencia (12/26), con proporciones de longitud 1,4 y 2 la preferencia por la corta es significativa y creciente (15/18 y 14/14), y en 11 de 14 experimentos más del 80 % del tráfico usó la rama corta. El mecanismo es realimentación positiva sobre la feromona, y el artículo lo explica por la asimetría temporal de los primeros segundos: las hormigas marcan en los dos sentidos y la rama corta queda doblemente marcada. La regla que da la clase (que el rastro más grueso tarda más en evaporarse) no es la del artículo, que descarta explícitamente la evaporación porque la feromona dura del orden de 30 minutos; y su «típicamente el 99 % del camino hacia la solución óptima» tampoco sale de aquí, porque el resultado fuerte del trabajo es la fiabilidad, no una cifra de optimalidad.
- 17Seeley, T. D., & Visscher, P. K. Quorum sensing during nest-site selection by honeybee swarms. Behavioral Ecology and Sociobiology 56(6):594-601 2004. enlaceLas exploradoras no esperan a que la competición de bailes se resuelva por agotamiento: inician el despegue cuando el número de exploradoras en un sitio candidato llega a un quórum, entre 10 y 20 abejas (el relato de Cornell de los mismos datos: «en cuanto se veían unas 15 abejas en un sitio, el enjambre se marchaba hacia él»). La clase cuenta en su lugar una simulación de dos exploradoras con sitios a distinta distancia y concluye que el 99 % de la colmena se decide por la solución correcta, sin mencionar el quórum ni el umbral de las quince abejas. Las dos mitades son defendibles en abstracto, pero el mecanismo que cuenta es el cuadro anterior a 2004 y una cifra plana del 99 % no es un resultado publicado de estos experimentos. La otra mitad del fenómeno, que un sitio mejor provoca bailes más largos y más reclutamiento, la documenta la revisión de los mismos autores en Apidologie 35(2):101-116 (2004), https://doi.org/10.1051/apido:2004004.
- 17Dorigo, M. (tesis doctoral de 1992, Politecnico di Milano); Dorigo, M., & Gambardella, L. M. Ant System / Ant Colony Optimization (Ant Colony System aplicado al problema del viajante). IEEE Transactions on Evolutionary Computation 1(1):53-66 (Ant System 1996: IEEE Trans. SMC-B 26(1):29-41) 1997. enlaceAlgoritmos distribuidos en los que unas «hormigas» cooperativas depositan un análogo numérico de la feromona en las aristas de un grafo mientras construyen soluciones; se aplicaron primero al problema del viajante y al de asignación cuadrática, compiten con el recocido simulado y la computación evolutiva, y tienen aplicaciones comerciales en encaminamiento de red y trazado de cable. La clase no nombra a nadie, así que el algoritmo se identifica por la descripción: el Ant System de la tesis de Dorigo (con Maniezzo y Colorni) es exactamente «hormigas virtuales» siguiendo el refuerzo de feromona sobre un grafo del viajante, y el encaminamiento en redes de telecomunicaciones es una aplicación documentada. Su «no hay solución estándar al problema del viajante» es impreciso pero justo en contexto: existen soluciones exactas, solo que no escalan.
- 17Sapolsky, R. M. Determined: A Science of Life Without Free Will, cap. 5 «A Primer on Chaos» (y cap. 7, «A Primer of Emergent Complexity»). Penguin Press / Bodley Head 2023. enlaceEl tratamiento de libro de texto que el propio autor da a este material: el caoticismo como dinámica no lineal determinista pero impredecible y, después, la emergencia, con reglas locales simples, ninguna autoridad central y propiedades que solo existen en el nivel emergente. La coincidencia es buena y el calendario también: el libro apareció en 2023, el año anterior a esta clase, su capítulo 5 se titula literalmente «A Primer on Chaos» y el 7, «A Primer of Emergent Complexity», el mismo orden de la clase (reduccionismo, caos, emergencia). Su «ese libro mío sobre el caos» es impreciso: el libro va de libre albedrío.
- 17Green, P. B. (y su grupo) El relato de las tres reglas de Paul Green para la hoja de monocotiledónea (sin publicación localizada). . sin fuente localizableNo localizado. Lo publicado de Green (por ejemplo Green 1999) defiende que el patrón surge de la mecánica del tejido respondiente, pero no se ha encontrado ningún trabajo que dé un recuento de tres reglas para las hojas de monocotiledónea. La clase lo presenta como el remate de una charla en un retiro de facultad. Se deja sin resolver en vez de rellenarlo con un trabajo vecino sobre sistemas modelo de hoja.
Clase 18 · Más es distinto: los cuatro motivos · 17 fuentes
- 18Toshie Nakagaki, Hiroyasu Yamada y Ágnes Tóth Maze-solving by an amoeboid organism. Nature 407(6803):470 (comunicación breve) 2000. enlaceEl primer trabajo estrella con mohos mucilaginosos. Un plasmodio de Physarum polycephalum colocado en un laberinto de film plástico con dos fuentes de comida retrae sus seudópodos hasta dejar solo el camino más corto entre ambas: la solución de longitud mínima. La clase lo cuenta bien: se ponen copos de avena, el moho se desparrama por todos los pasillos y al volver solo queda «una única línea recta de moho». El motivo es el del curso: el frente del moho tira hacia la comida y cuanto mejor es la comida, más fuerte tira, lo que recluta más células y refuerza ese mismo camino. Los copos de avena no son un detalle pintoresco: son el alimento estándar de esta literatura. Publicado el 28 de septiembre de 2000; la clase dice «en Nature o en Science, nunca me acuerdo», y era Nature.
- 18Atsushi Tero, Seiji Takagi, Tetsu Saigusa, Kentaro Ito, Dan P. Bebber, Mark D. Fricker, Kenji Yumiki, Ryo Kobayashi y Toshiyuki Nakagaki Rules for Biologically Inspired Adaptive Network Design. Science 327(5964):439-442 2010. enlaceCopos de avena colocados en las posiciones de las ciudades alrededor de Tokio, con barreras de luz haciendo de montañas y lagos. La red de tubos que forma el moho tiene una eficiencia, una tolerancia a fallos y un coste comparables a los del sistema ferroviario real de Tokio, y un modelo sencillo inspirado en su comportamiento lo reproduce. Dos matices frente a la clase: el artículo dice «comparables», no «estadísticamente indistinguible», que es más fuerte de lo que sostiene el texto; y los autores son de la Universidad de Hokkaido, de Oxford e de Hiroshima, no de la Universidad de Tokio. La leyenda de la clase —que la barrera es el contorno de Tokio por la costa y que las montañas y lagos se simularon con luz— sí cuadra con el trabajo.
- 18sin identificar en la clase (cuatro afirmaciones con 80/20 o con fuente sin localizar: pez depredador, delfines, microglía y el robot del parachoques). sin identificar en la clase. sin fuente localizableBajo esta ficha se agrupan las afirmaciones de la clase que llevan el mismo sello de datos sin fuente localizada. Primera, el pez depredador: «el 80 % de las incursiones, el 80 % de los viajes, son alrededor del 20 % de la longitud máxima a la que llegas», y añade que eso cambia bajo una circunstancia interesante que no cuenta. No se nombra la especie y no hemos encontrado ninguna fuente para esa cuantificación concreta; lo más cercano es la literatura de vuelos de Lévy en depredadores marinos (por ejemplo Sims et al., Nature 451:1098-1102, 2008, sobre tiburones, atunes y bacalaos), que sí describe distribuciones de ley de potencias en las longitudes de desplazamiento, pero no esa proporción. Segunda, los delfines: «en torno al 80 % de las interacciones son dentro de la familia y el 20 % fuera». La literatura describe a los delfines mulares como animales de fusión-fisión con asociados preferidos de largo plazo, lo que es compatible en lo cualitativo, pero no hemos encontrado ese reparto. Tercera, la microglía: «en torno al 80 % de las cacerías ocurren dentro del 20 % de la distancia máxima». La vigilancia del territorio por los procesos microgliales está muy documentada, pero ninguna de las fuentes consultadas cuantifica la distancia de exploración como ley de potencias. Cuarta, el robot del parachoques: un estudio sin autores, sin año y sin revista en el que un robot tipo Roomba con parachoques delantero aprendió a ir hacia atrás y chocar con todo, porque nadie le dijo que detrás no había sensor. El modo de fallo es una advertencia clásica en robótica reactiva, pero no hemos podido identificar el resultado concreto, así que no se le atribuye ninguna cita. Ninguna de las cuatro se presenta como error: se quedan como afirmaciones cuyo trabajo no hemos localizado.
- 18Eugenio Azpeitia, Jérémy Herrera, Camille Bonnet, François Parcy, Christophe Godin y colaboradores (codirección de François Parcy, Universidad Grenoble Alpes) Cauliflower fractal forms arise from perturbations of floral gene networks. Science 373(6551): eabg5999 (9 de julio de 2021) 2021. enlaceEl trabajo que corresponde a la foto del material: el cogollo fractal y autosimilar de la romanesca y de la coliflor sale de una reacción en cadena en la red de genes florales, en la que los meristemos de la inflorescencia no maduran y siguen generando meristemos nuevos, y el patrón se puede modular perturbando esa red. Los propios autores subrayan que no hacen falta muchos cambios genéticos para obtener la forma de una coliflor ni para pasar de una coliflor a una romanesca. Lo que no hemos podido localizar en ninguna fuente es la cifra exacta que da la clase —dos genes—, así que el «dos» se queda sin confirmar y así se marca en el texto. Sobre el nombre: la romanesca es una variedad de Brassica oleracea, la misma especie que la coliflor y el brócoli, así que la duda que él mismo plantea en el aula está resuelta a favor de la coliflor.
- 18Jimena Andersen, Omer Revah, Yuki Miura, Nicholas Thom, Neal D. Amin, Kevin W. Kelley y colaboradores; laboratorio de Sergiu P. Pașca Generation of Functional Human 3D Cortico-Motor Assembloids. Cell 183(7):1913-1929 (23 de diciembre de 2020) 2020. enlaceOrganoides corticales o de rombencéfalo/médula espinal humanos ensamblados con esferoides de músculo esquelético humano forman «ensambloides» corticomotores tridimensionales: los corticales provocan la contracción del músculo a través de circuitos descendentes, y esos circuitos se refinan con la actividad. Es la mitad muscular de la frase de la clase («conecta tu organoide a un organoide muscular y mira si pueden dirigirse mutuamente para contraerse con órdenes de este»). La identificación es nuestra: él no nombra a nadie y lo presenta como parte de lo que «la gente anda trasteando», así que la ficha documenta el experimento al que apunta, no lo que él dijo que era.
- 18Brett J. Kagan, Andy C. Kitchen, Nhi T. Tran, Forough Habibollahi, Moein Khajehnejad, Bradyn J. Parker y colaboradores; laboratorio de Karl J. Friston In vitro neurons learn and exhibit sentience when embodied in a simulated game-world («DishBrain»). Neuron 110(23):3952-3969 (7 de diciembre de 2022) 2022. enlaceUnas 800.000 neuronas corticales humanas (derivadas de iPSC) o de ratón, sobre una matriz de microelectrodos de alta densidad, quedaron encarnadas en un mundo de juego simulado tipo Pong; con retroalimentación electrofisiológica en bucle cerrado mostraron un aprendizaje aparente en cinco minutos, que los controles en bucle abierto y sin estímulo no mostraron. Es el programa al que apunta el «o pégalo a un robot» de la clase: la misma línea de investigación, pero con cultivos disociados en dos dimensiones sobre electrodos, no con un organoide tridimensional, y con un juego simulado en lugar de un robot físico. Se mantiene como candidato precisamente por eso.
- 18Cleber A. Trujillo, Richard Gao, Priscilla D. Negraes, Jing Gu, Justin Buchanan, Sebastian Preissl y colaboradores; laboratorio de Alysson R. Muotri Complex Oscillatory Waves Emerging from Cortical Organoids Model Early Human Brain Network Development. Cell Stem Cell 25(4):558-569.e7 (3 de octubre de 2019) 2019. enlaceOrganoides corticales humanos sobre matrices de microelectrodos desarrollaron una actividad eléctrica creciente a lo largo de meses; los eventos oscilatorios periódicos espontáneos dependían de señalización glutamatérgica y GABAérgica, y los eventos de red sincrónicos «se parecían a rasgos observados en la electroencefalografía de prematuros humanos». La clase dice que las ondas se parecen a las de «un feto del primer trimestre»: la comparación del artículo es con prematuros, no con un feto del primer trimestre, y la versión que circuló en prensa fue «como las ondas de un recién nacido a los nueve meses de cultivo». El artículo además dice explícitamente que no reclama equivalencia funcional con una corteza.
- 18Cleber A. Trujillo, Edward S. Rice, Nathan K. Schaefer, Isaac A. Chaim, Emily C. Wheeler, Assael A. Madrigal y colaboradores; laboratorio de Alysson R. Muotri Reintroduction of the archaic variant of NOVA1 in cortical organoids alters neurodevelopment. Science 371(6535): eaax2537 (12 de febrero de 2021) 2021. enlaceEl «mételes un gen neandertal y mira qué pasa» de la clase. Con CRISPR se sustituyó el alelo moderno de NOVA1 por la variante arcaica (neandertal y denisovana) en células madre humanas: cambió el empalme alternativo de genes del neurodesarrollo, los organoides corticales quedaron más pequeños y con más complejidad de superficie, se alteraron redes de proteínas sinápticas y la actividad de red salió más en ráfagas y menos sincronizada. El «gen» es en realidad un solo cambio de aminoácido (isoleucina por valina en la posición 200). La advertencia que la prensa suele omitir, y que la ficha recoge: meter un gen arcaico en células por lo demás modernas no puede mostrar qué hacía ese gen en humanos arcaicos.
- 18The Chimpanzee Sequencing and Analysis Consortium (Mikkelsen, T. S., et al.) Initial sequence of the chimpanzee genome and comparison with the human genome (Consorcio de Secuenciación del Chimpancé). Nature 437(7055):69-87 (1 de septiembre de 2005) 2005. enlaceEl primer borrador del genoma del chimpancé comparado con el humano: alrededor de un 1,23 % de divergencia en las posiciones alineadas de un solo nucleótido, que es de donde sale el eslogan del «98-99 % idénticos». El catálogo de diferencias está enriquecido en genes de respuesta inmunitaria y de olfacción, y en unos pocos genes con función nerviosa; el consorcio señaló además cambios en genes como ASPM y MCPH1 para trabajos posteriores. La clase redondea al 98 % (y contando inserciones y deleciones, el propio consorcio tituló un 96 % de identidad global). Los «mitad olfativos, mitad inmunitarios, un puñado para el cerebro» son su resumen, no cifras del artículo, y que los chimpancés tengan mejor olfato que nosotros no viene de este trabajo. Su «eso va a explicarlo todo» es la tesis que la clase desmonta a continuación.
- 18Silvia Benito-Kwiecinski, Stefano L. Giandomenico, Magdalena Sutcliffe, Elizabeth S. Riis, Paula Freire-Pritchett, Iván Kelava y colaboradores; laboratorio de Madeline A. Lancaster An early cell shape transition drives evolutionary expansion of the human forebrain. Cell 184(8):2084-2102 (15 de abril de 2021) 2021. enlaceOrganoides cerebrales de células humanas, de gorila y de chimpancé mostraron que los progenitores neuroepiteliales humanos retrasan su transición a un estado maduro (parecido a la glía radial apical); el gen ZEB2 impulsa esa transición, y manipularlo convierte organoides humanos hacia arquitectura de simio y al revés. Es decir: la diferencia humana está en cuánto tiempo siguen dividiéndose los progenitores. La clase lo cuenta como «genes de cuántas rondas de división», y las rondas son la consecuencia de ese retraso más que la regla codificada. Las cifras que recita —tres o cuatro duplicaciones más, tres o cuatro veces más grande— son su aritmética, no del artículo: la masa cerebral humana es unas tres veces la del chimpancé, y el número de duplicaciones no aparece ahí. La identificación es nuestra: él no nombra ningún trabajo.
- 18Robert Axelrod (la regla ganadora, ojo por ojo, la presentó Anatol Rapoport) Effective Choice in the Prisoner's Dilemma (primer torneo) / More Effective Choice in the Prisoner's Dilemma (segundo) / The Evolution of Cooperation. Journal of Conflict Resolution 24(1):3-25; 24(3):379-403; Science 211(4489):1390-1396 (1981) 1980. enlaceLos torneos por computadora de 1979 y 1980 sobre el dilema del prisionero: la regla más simple de todas las presentadas —ojo por ojo, cooperar primero y luego copiar la jugada anterior del contrario— obtuvo la mejor puntuación entre 14 y luego 62 participantes, y el análisis la describe como buena, provocable, perdonadora y clara. La clase lo cuenta sin nombrar a nadie y su «habría perdido cualquier batalla» coincide exactamente con la literatura: el ojo por ojo no puede lograr nunca una diferencia de puntos positiva frente a otro programa. El matiz que la clase omite es que la supremacía del ojo por ojo depende del formato del torneo, del criterio de puntuación y de la matriz de pagos, así que no es una ley general; y no es una estrategia de generación de cooperación, sino de mantenimiento.
- 18Katherine M. Bishop y Douglas Wahlsten Sex Differences in the Human Corpus Callosum: Myth or Reality?. Neuroscience & Biobehavioral Reviews 21(5):581-601 1997. enlaceLa meta-análisis que desmontó la historia del cuerpo calloso. Revisó 49 estudios publicados desde 1980 y no encontró ninguna diferencia sexual significativa en el tamaño ni la forma del esplenio, con o sin ajuste por tamaño del cerebro; los datos de cadáveres anteriores a 1910 muestran que los hombres tienen cerebros mayores y, en términos absolutos, un cuerpo calloso también mayor. Los autores concluyen que la afirmación popular de que las mujeres tienen un esplenio mayor no se sostiene. Frente a esto, la clase presenta «el cuerpo calloso es más fino en los machos» como dato establecido y lo encadena con el rendimiento cognitivo; el trabajo que fundó esa literatura (de Lacoste-Utamsing y Holloway, 1982) salió de 14 cerebros de autopsia, con una p que sus propios autores reconocieron como «floja» (0,08), y con resonancia posterior no se puede predecir el sexo ni la edad por la forma del cuerpo calloso.
- 18Christine de Lacoste-Utamsing y Ralph L. Holloway Sexual dimorphism in the human corpus callosum (nota de investigación). Science 216(4553):1431-1432 1982. enlaceEl origen de todo el asunto: en 14 cerebros de autopsia (5 de mujer, 9 de hombre) el esplenio femenino se describió como más grande y más bulboso que el masculino, con una sugerencia de relación con la lateralización hemisférica. Holloway reconoció después que la muestra era «muy pequeña» y que la p era «una miseria» (0,08). Los estudios con resonancia que vinieron después no replicaron el hallazgo, y la meta-análisis de Bishop y Wahlsten (1997) no encontró dimorfismo esplénico. La clase no cita este trabajo, pero es el único origen rastreable de la afirmación: la distribución de proyecciones corticales sesgada hacia la izquierda que se presenta como dimorfismo en los machos. El original está bajo muro de pago; lo que se puede consultar es el resumen de la revista y la reproducción de sus estadísticas en Bishop y Wahlsten.
- 18hipótesis asociada a Courchesne y Pierce (2005) y a los trabajos post mortem de Zikopoulos y Barbas (2010); contrastada y matizada después (hipótesis de hiperconectividad local con hipoconectividad de largo alcance en el espectro autista). varias; abajo, las revisiones y pruebas representativas 2005. enlaceLa hipótesis dominante describe hiperconectividad local con hipoconectividad de largo alcance en el espectro autista, apoyada en trabajos post mortem sobre densidad de axones en la corteza prefrontal. Pero el resultado no está cerrado: un estudio de MEG de 2013 encontró también conectividad funcional local reducida, «contrario a la hipótesis dominante en el campo», y las revisiones sistemáticas posteriores (por ejemplo de 2017) califican la sobreconectividad local de «menos robustamente establecida», con muchos estudios que encuentran subconectividad local o mezclas. La clase afirma la dirección popular sin nombrar ningún trabajo, y se cubre al final con un «la gente está empezando a aclararlo»; la identificación de la hipótesis es nuestra.
- 18múltiples; véase la revisión sobre por qué el supercontagio impulsa la pandemia y las revisiones sistemáticas de sobredispersión Supercontagio y la regla 20/80 en la transmisión del SARS-CoV-2 (sobredispersión de la COVID-19). por ejemplo, Infectious Diseases (Lancet) o revisiones en BMC Public Health 2021. enlaceLa transmisión del SARS-CoV-2 está muy sobredispersada: entre el 60 % y el 75 % de los casos no infectan a nadie, y en torno a un 10-20 % de los casos causan cerca del 80 % de las infecciones secundarias. Es decir, la regla del 20/80 se sostiene para la COVID-19 como para muchos otros patógenos, y la cifra que da la clase es la estándar. Lo que no es un hallazgo científico es el color moral que le pone: la misma literatura señala que la capacidad infectiva se distribuye de forma continua y que muchos eventos de supercontagio son ambientales (aglomeración, ventilación) más que conductuales.
- 18Frederico A. C. Azevedo, Ludmila R. B. Carvalho, Lea T. Grinberg, José M. Farfel, Renata E. L. Ferretti, Renata E. P. Leite y colaboradores; laboratorio de Suzana Herculano-Houzel Equal numbers of neuronal and nonneuronal cells make the human brain an isometrically scaled-up primate brain. Journal of Comparative Neurology 513(5):532-541 2009. enlaceEl primer recuento directo de células de un cerebro humano entero, con el fraccionador isotrópico y cuatro cerebros de hombre: 86.000 millones de neuronas y 85.000 millones de células no neuronales, con 16.000 millones de neuronas en la corteza cerebral y 69.000 millones en el cerebelo. Los «80.000 millones» de la clase son el redondeo de esa cifra; una revisión de 2025 señala que incluso los 86.000 millones arrastran mucha incertidumbre, porque la muestra original de cuatro cerebros da un intervalo de aproximadamente 73.000 a 99.000 millones. El «cerca de 20.000 genes» coincide con el recuento humano posterior a 2004, y las «100.000 neuronas» de la mosca de la fruta son la cifra tradicional; el conectoma completo del cerebro de la mosca cuenta unas 130.000.
- 18sin fuente primaria identificada; la cifra circula como estimación de manual y de divulgación (la cifra de la longitud total de los vasos sanguíneos). estimaciones de divulgación; los valores varían enormemente. enlaceLas fuentes discrepan en un orden de magnitud: la cifra habitual de 100.000 kilómetros (unos 60.000 millas) para el conjunto de los vasos es herencia de cálculos de principios del siglo XX, y las estimaciones modernas para un adulto bajan a unos 9.000-19.000 kilómetros. No hay una medición definitiva, porque el resultado depende del tamaño corporal y del método. La clase da 48.000 millas de capilares, con la advertencia explícita de que no tiene ni idea de quién mide estas cosas y que se lo cree por fe. No hemos encontrado ninguna fuente para esa cifra concreta de capilares, así que se queda sin resolver, y no como error: él mismo se desmarca.