Neuroendocrinología
Este tema sube a la hormona y al circuito que la produce, y rompe las reglas generales de la neuroendocrinología. La primera clase revisa cuatro dogmas —un solo neurotransmisor por neurona, el potencial de acción de todo o nada, una hormona por escalón en el eje del estrés— y enseña dónde se quedan cortos: hay neuronas que liberan dos mensajeros, el potencial cambia rama por rama y el hipotálamo secreta una combinación distinta según el estresor. La segunda cambia el foco de quien habla a quien escucha: receptores que suben y bajan de número, que cambian de piezas y que dan efectos contrarios. La respuesta, casi siempre, depende.
15 · Neuroendocrinología avanzada (1)
Cuatro dogmas y sus grietas
Dale, el hipotálamo y los glucocorticoides frente a sus reglas generales.
Lectura de 1 minuto
- La clase revisa cuatro reglas generales de la neurociencia y la endocrinología y enseña dónde se quedan cortas.
- Primera regla: una neurona libera el mismo neurotransmisor por todos sus terminales; hay neuronas que liberan dos, a veces desde la misma vesícula.
- Los dos mensajeros suelen ser de clases químicas distintas, con velocidades distintas: una fracción de segundo frente a un día entero de transcripción.
- Segunda regla: el potencial de acción es de todo o nada; densidades distintas de canales en cada bifurcación cambian su forma rama por rama.
- El eje del estrés tiene el mismo dogma, una hormona por escalón, y también lo rompe: la CRH, la oxitocina, la vasopresina y la adrenalina liberan ACTH.
- Según el estresor, el hipotálamo secreta una combinación distinta, y esa combinación codifica qué tipo de estresor es.
- La geografía importa: en la hipófisis las células están dispersas, y una corticotropa responde distinto según qué tipos de célula tenga al lado.
- El hipotálamo puede repartir la hormona de forma desigual por capilares del sistema portal, con concentraciones distintas de la misma hormona.
- La neurona se mide a sí misma con autorreceptores, y los mensajeros retrógrados —ATP y adenosina— informan hacia atrás de su estado energético.
- Mary Dallman añadió al canal del nivel un canal de la tasa: los glucocorticoides se miden primero por lo rápido que suben y después por cuánto hay.
Las dos leyes y sus grietas
La clase abre con dos dogmas que se enseñan como leyes. La primera: cuando una neurona dispara, libera el mismo neurotransmisor por cada terminal axónico. La segunda: el potencial de acción es de todo o nada y se regenera igual por todas las ramas.
La primera se rompe porque hay neuronas que liberan dos neurotransmisores desde cada terminal. Suelen ser de clases químicas distintas, con velocidades distintas: una cambia los iones de la célula vecina en una fracción de segundo; la otra altera la transcripción de genes en un día.
La segunda se rompe por los canales iónicos: densidades distintas de canales de calcio en cada bifurcación cambian la forma del potencial de acción rama por rama, y hay neuronas que cierran una bifurcación.
Una hormona por escalón, o no
En el eje del estrés el dogma es el mismo: el hipotálamo libera una hormona, esta hace que la hipófisis libere la suya, y la hipofisaria manda a las suprarrenales soltar glucocorticoides.
Cuando en los años ochenta se resolvió la estructura de la CRH (la caracterización del péptido de 41 aminoácidos), ya se sabía que hay más de una sustancia capaz de liberar ACTH: también la oxitocina, la vasopresina y la adrenalina.
La multiplicidad es información, no ruido: según el estresor, el hipotálamo secreta una combinación distinta, que hace algo diferente con la presión arterial y la frecuencia cardiaca y codifica qué clase de estresor es.
La geografía importa
Misma señal, distinto efecto según dónde caiga. En la hipófisis anterior conviven al menos cinco tipos de célula, dispersos, sin vecindarios: una corticotropa rodeada de gonadotropas responde a la misma CRH de forma distinta que una rodeada de somatotropas.
El hipotálamo reparte la hormona de forma desigual. El trabajo de John Porter describe capilares del sistema portal hipotálamo-hipofisario con concentraciones distintas de la misma hormona, de modo que la señal llega más a unos tipos de célula que a otros. Heterogeneidad por arriba y por abajo, y ninguna del todo entendida.
La neurona que se mide a sí misma
La neurona quiere liberar una cantidad de neurotransmisor y saber si lo consiguió. La solución es un receptor en su propio terminal, el autorreceptor, que mide una milésima parte de lo liberado y multiplica para estimar el total. Con dos transmisores, dos autorreceptores que mantengan la proporción.
Parte del neurotransmisor liberado que vuelve y se une al autorreceptor del propio terminal; el receptor multiplica por 10⁴ para estimar cuánto salió en total.
Y hay mensajeros que van al revés: los retrógrados se fabrican en la espina dendrítica, donde no hay potenciales de acción, y viajan hacia atrás. El caso más elegante es el del ATP. Una neurona bien alimentada lo suelta hacia atrás para decir que va sobrada; una con un derrame o en crisis epiléptica lo degrada hasta adenosina para pedir que se le hable más bajo, y esa acumulación suele terminar la crisis.
El nivel y la tasa
La retroalimentación del sistema endocrino se cuenta con el depósito del inodoro: un umbral, un flotador que mide el agua y una señal que cierra el grifo al llenarse. Cuanto más glucocorticoides en sangre, más se corta la liberación de CRH.
En los años sesenta, Mary Dallman descubrió un segundo canal (el trabajo que lo propuso) que no mide cuánto hay, sino a qué velocidad sube. Actúa en los primeros minutos; después vuelve el canal del nivel, con las mismas neuronas.
La clase resume aquel trabajo como «no salió de un experimento; era un artículo teórico», y esa etiqueta no encaja: el artículo de 1969 informa de sus propios experimentos en rata, además del análisis de sistemas que predice los dos canales. La idea que la clase pone en valor sigue en pie.
Quiénes salen en este tema
Las dos leyes
- Sir Henry Hallett Dale — Farmacólogo y fisiólogo inglés (1875-1968), premio Nobel de Fisiología o Medicina en 1936, compartido con Otto Loewi, por el trabajo sobre la acetilcolina como neurotransmisor; su nombre bautiza el «principio de Dale». La clase lo presenta como el legislador de la neurociencia y le cuelga dos leyes. La primera —un solo transmisor por neurona— es la lectura estricta que su propio principio no sostiene, y la segunda —el potencial de acción de todo o nada— no es suya: se estableció para el músculo cardiaco y para el nervio a principios del siglo XX. Wikipedia
El control local de la hipófisis
- John C. Porter — Neuroendocrinólogo estadounidense (1924-2018), de la UT Southwestern. Inventó el dispositivo que permitía recoger sangre del sistema portal hipofisario sin mezclar los péptidos, y de ahí salió el método estándar para muestrear esa sangre; colaboró después con Roger Guillemin, cuyo Nobel de 1977 se apoya en ese trabajo. La clase le atribuye además que capilares individuales lleven concentraciones distintas de la misma hormona hipotalámica, y eso no se ha localizado: véase el desplegable de honestidad. UT Southwestern
La retroalimentación de los glucocorticoides
- Mary F. Dallman — Endocrinóloga y neuroendocrinóloga estadounidense (fallecida el 21 de diciembre de 2021). Se doctoró en Stanford con F. Eugene Yates, se incorporó a la UCSF en 1970 y fue una de las primeras mujeres con plaza titular en ciencias básicas de esa universidad. Pionera de la dinámica del eje hipotálamo-hipófisis-suprarrenales y de la retroalimentación de los glucocorticoides: la clase le atribuye el segundo componente, el sensible a la tasa. Sobre el artículo y sobre su puesto exacto, véase el defecto D1. Endocrine News
El laboratorio que no nombra
- Wylie Vale — Neuroendocrinólogo estadounidense (1941-2012), del Instituto Salk de La Jolla, donde dirigió los Clayton Foundation Laboratories for Peptide Biology. Su grupo caracterizó la CRF en 1981, y la clase dice que aquel laboratorio era el suyo de postdoc sin dar el nombre. La cadena que lo sostiene es la autoría compartida de Sapolsky con el grupo de Vale en un artículo de 1987 y la lista de antiguos alumnos que recoge alguna fuente; no hemos encontrado una página del propio centro que lo afirme en una línea, así que queda como candidato. Salk Institute
Leer la clase entera, palabra por palabra
Transcripción automática del vídeo, sin corregir: solo la hemos limpiado de ruido del subtítulo, maquetado en párrafos y puesto los títulos que él mismo va anunciando. Los estudios y las citas se dejan en su inglés original y se pueden pulsar.
Traducción al castellano automática: si un matiz importa, comprueba el original inglés.
Okay. So we transition now to a broad overview of sort of some more advanced topics in neurobiology, endocrinology, and neuroendocrinology. And this is a completely obligatory step because what we've gotten through, thanks to the catch-up, thanks to Biocore, thanks to HumBio core, whatever, is a whole bunch of basic facts about the workings of the nervous system and hormones.
And of course, what happens at this point is you then find out, well, that's how it works most of the time. So what we're going to look at is some parallel dogmas that we all learn about the brain and hormones, and inversion, seeing what's actually happening being far more complicated, far more interesting, far more allowing for informational subtlety being communicated by neurons, by hormones, all of that, and far more explanatory most of all about why you are different from the person sitting next to you.
Las dos leyes de Dale
Okay. So the first piece of this, we bring in one of the gods of neuroscience, Dale. Dale, early in the last century, was the lawgiver. He was the person who went up to the mountains and came back with the commandments in stone: Dale's two laws of neuronal function. The two laws. The first one is, when a neuron has an action potential, it releases the same neurotransmitter from each of its axon terminals, each of its 50,000 ones.
La primera ley se rompe: dos transmisores en el mismo terminal
Okay, so that was like an amazing observation, and people have learned that for centuries. And the sort of complication here, the qualifier, and one that's immensely interesting, is that sometimes the most formal, strict version of Dale's law number one is incorrect in that sometimes you have neurons that from every axon terminal are releasing two types of neurotransmitters, the same two in each case, multiple neurotransmitters.
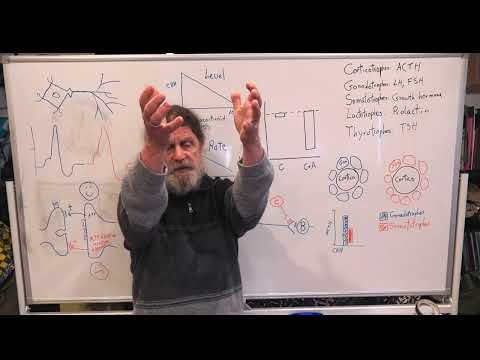
And what we see here in this diagram, we see blue dots and orange dots. We see two different neurotransmitters coming out. Heresy! Heresy! Both of them in the same vesicle. In some cases, the multiple neurotransmitter scenario is you'll have a vesicle with the blue ones and a vesicle with the red ones, or, and here we've got the receptors for the two different types.
Totally amazing. Is that totally amazing? Well, other than showing that, you've got to say Saint Dale's law, saying, "Whichever neurotransmitter or combination of neurotransmitters come out of this axon terminal is going to come out of all of them as well." Okay, so that's 21st-century Dale. But you can see multiple neurotransmitters. What is that about?
Dos clases químicas y dos velocidades
And what you see is they're typically two very different structural classes, chemical structures of neurotransmitters: ones that are made out of peptides versus ones that are not. If this is unfamiliar terrain, so ignore this entirely: just structurally different. They tend to have different functions. They tend to work at different speeds, things of that sort.
So that suddenly greatly expands one's neurotransmitter palette there. If you could be releasing multiple messengers with different sorts of effects, one of them will interact with its receptor and change ionic events in a fraction of a second. The other one will change gene transcription over the next day or so. You just have a much, much richer palette of ways in which one neuron could talk to another.
El equivalente endocrino: la cascada hasta los glucocorticoides
Now, the exact equivalent over in the endocrine system, what is it? This is not a Dale, Dale, but some equivalent sort of thing, like, okay, the hypothalamus releases a hormone which causes the pituitary to release its cognate hormone. CR, corticotropin-releasing hormone, causes the release of ACT, corticotropic hormone. This hypothalamic releasing hormone is the thing that tells the pituitary to release its hormone, which will then go to the adrenal glands and tell it to release glucocorticoids.
So that's your basic cascade. The hypothalamus has one releasing hormone which releases one of the pituitary hormones, the half dozen or so in the anterior pituitary. That's how it works. And in the early 80s, when people were first learning about CR, when the structure of it was first solved — and that was the lab I was doing my postdoc in — people found something totally bizarre, which was that there was more than one kind of CR in the hypothalamus.
Más de una hormona capaz de liberar ACTH
There was more than one kind of hormone that could cause the pituitary to release ACT. And it took people massive amounts to figure out that CR type 2 was actually the hormone oxytocin coming out of the hypothalamus. Vasopressin was another ACT-secreting thing that could cause the pituitary to secrete this. Epinephrine, norepinephrine, CR, along with a whole bunch of these other hormones that collectively could release ACT.
Okay. My God, why the multiplicity here? And exactly the same theme as here? You begin to get control, different time courses, different mechanisms, all of that. What people began to see was for one type of stressor, the hypothalamus secreted CR, oxytocin, and epinephrine. For a different type of stressor, CR, vasopressin, and epinephrine.
El hipotálamo codifica qué tipo de estresor es
For another, there was a coding at the level of the hypothalamus for what kind of stressor it was: stressor, like you're psychologically stressed because you've been put into a new, novel environment; stressor, you've just had your limb broken; stressor, massive whatever—psychological, somatic. And it turned out there was coding of the inputs into the hypothalamus to the cluster of oxytocin-releasing neurons, the cluster of vasopressin neurons, the cluster of CR ones, all of that.
And you got coding for that great, amazing specificity. That was so cool. People spent the whole decade sorting that one out. What's interesting about this is, you know, when it's CR plus this, you release ACT, but you do something to blood pressure that's very different from when you have CR with this, you do something to heart rate.
You have coding for the additional effects. Yeah. Release both of these, and they have different time courses, different mechanisms of action. Release this orchestration – stressor-specific orchestration: psychological stress versus physical, all of that. A temperature stress versus a blood pressure stress, versus... And you get different coding, and somewhere in there, just to make life really complicated, there's also a corticotropin-inhibiting hormone that plays a role.
So this whole array, this whole orchestration, just to get more subtle control, because collectively they all release ACT to different extents, with different time courses, and do additional things as well. So more specificity in that realm. Another way now in which poor Dale is going to go down the tubes: spatial distribution. What we just saw was neurons are way more fancy in terms of the messenger they release.
They can have combinations. Neuroendocrine systems are way more complicated. They can be regulating a hormone through multiple possible different messengers and combinations and all that sort of thing. Now we see something about spatial stuff in both the nervous system and the endocrine system. Nervous system. What is the dogma?
La segunda ley: el potencial de acción de todo o nada
You were all taught that, that we were all taught to say at birth, which is, "Okay." Once a neuron gets sufficiently excited to have an action potential, the action potential functions in a — say it along with me — in an all-or-none matter. It's the same action potential jumping down the axon, and the same one at this first split into two branches, and the same one at a branching after that.
All of that. And it's the same action potential that propagates down to all of the 50,000 axon terminals. Here Dale comes back again with his second granitic law that we all bow down to, saying that when you get an action potential, the same action potential shoots down every single branch down there and, as we saw, releases the same neurotransmitter or the same combination of neurotransmitters.
And his second law is, "The action potential is all-or-none, regenerates." And the exact same action potential that started here looks exactly the same whether you were here or here or here. And of course that one turns out to be more complicated because it turns out that you could deposit different densities of ion channels, calcium channels for example, at different branch points, and neurons do that.
Cada bifurcación, su propio potencial de acción
And what that does — you could do it here, you could do it right down at the ends there — is you individuate, you finetune, you accessorize, you make special the action potential coming down this branch versus that branch. And what you'll see is, depending on the density of some of these ion channels here, that the shape of the action potential, the width of it, will vary.
What's the consequence here? This is how long it's going on for, or the shape of the recovery period will change. The shape of the whole thing depending on which branch it goes down and the density of different types of channels in there. How do neurons regulate that?
That is amazing and is something we're probably going to look at later this week with emergence, all of that. How does it know to have this many of these channels in this one to get this kind of action potential versus this many, this other many, in this one to get this shape?
Where's that regulation coming from? The main thing is Dale was wrong. It's not the exact same action, but the main thing is neurons have this informational control as to how strong, how long of a signal is coming down different branches. And there's even circumstances where a neuron appears to be able to decide, "Nothing's going down this branch right now," to shut off that bifurcation point.
So regulation on that level, far more regulation than people ever anticipated. So Dale turning over in his grave for the second reason: an action potential gets to all the axon terminals, maybe not even that all the time, but regulation along the way, different branches are yelling their excitation in qualitatively different ways. The exact equivalent now with the endocrine system.
Oh, very simple spatial stuff. The hypothalamus releases its hormone, CR for example, which goes to the pituitary and releases ACT. Very simple. The pituitary is like, the anterior pituitary is this dizzyingly complex gland, and it releases like a whole bunch of hormones. It releases ACT, which we were just looking at. Again, if this freaks you out, go to the catch-up section.
La hipófisis anterior: cinco tipos de célula
It releases luteinizing hormone, follicle-stimulating hormone, growth hormone, prolactin, thyroid-stimulating, a whole array of them. And every single cell in the anterior pituitary does not have the capacity to release all these different... You've got specialized cells in the pituitary. Corticotrophs release ACT, gonadotrophs, somatotrophs, lactotrophs, thyrotrophs. Different cell types are making their characteristic hormone and secreting it into the bloodstream in response to the hypothalamus sending its characteristic hormone down to stimulate.
CR, stimulating the corticotrophs to release ACT. Growth hormone-releasing hormone stimulating the somatotrophs to release growth hormone. Okay, so that's great. So we've got a whole bunch, at least five different cell types in the anterior pituitary. So the obvious spatial question now: do you have the somatotroph neighborhood?
Do you have the thyrotroph neighborhood? Do you have specialized subparts? No. What you see instead is just a scattering of all the different subtypes. A very relevant question is to ask what kind of neighborhood is any of this particular somatotroph cell, this particular thyrotroph cell, as shown here, as follows. Here's one corticotroph cell that just happens to be in a neighborhood completely surrounded by gonadotrophs.
El efecto de vecindad
In contrast, in this other part of the pituitary, here's one corticotroph cell surrounded by nothing but somatotrophs. And what you see is, for the same amount of CR coming down, these two differ in how much ACT they pump out, they differ in their sensitivity to the signal. Local control on that level. And what your handout has is the most godawful diagram imaginable, and immediately ignore it.
It's just showing, with one of these types here, what are all the local signals coming from the surrounding cell types? Because you will not only get a string of gonadotrophs or strings, but a string of a mixture of them, all of that. What kind of signals are coming in there modulating the sensitivity of it?
Oh my God, incredible control there. Incredible control, in that the same hypothalamic signal will have a different impact on pituitary hormone release depending on which part of the pituitary, what local little neighborhood you're tapping into. Okay, that's great. That's totally fascinating. But wait, aren't you just dumping your hypothalamic hormone all over the anterior pituitary?
El sistema portal hipotálamo-hipofisario
So, you're stimulating the really responsive corticotrophs and you're also stimulating the less responsive ones. And what have people found since then? The work of a guy named John Porter, showing: Okay, so you got your hypothalamus and you got your pituitary and it looks just like this. And you've got a vascular system, blood vessels coming down, called the hypothalamic-pituitary portal system, carrying these hypothalamic hormones down to the pituitary.
Porter: cada capilar con su concentración
And what he showed is that individual microscopic little threads of these capillaries have different concentrations of the same hypothalamic hormone. The hypothalamus is able to differentially sort of shunt the hormone more in the direction of this type of corticotroph or that type of corticotroph, that sort of thing. And you got control up on that level.
And I spent two years of my life as a postdoc learning how to cannulate one single one of those blood vessels to look at it. And that was the most exciting thing since neuroanatomy. But what you see is a whole additional level of regulation here. So a neuron does not just send an action potential.
It can finesse. It could massage. It gets shaped, what sort of signal it is sending to different of the downstream neurons. A hypothalamus does not just send a secrete ACT signal. It could control: is it sending it to more sensitive neighborhoods, the less responsive ones?
And it's the same thing for every one of these. Good. Next thing, next thing where we see elaborations. And in terms of going through this, do not be memorizing all of this. Just conceptually, get a sense of what's going on: that you get heterogeneity of responsiveness, and in the hypothalamus you have heterogeneity of what sort of action potential is reaching the end, and you have control on this level, and it's still poorly understood in both of these domains.
La regulación por retroalimentación negativa
Next thing, next thing to look at — checking the time — next thing to consider: negative feedback regulation. Okay, negative feedback regulation. You flush the toilet and you now refill the tank, and you need to have a negative feedback signal telling you when the tank is full. You need to have a way of measuring the amount of water filling up in the tank.
A flotation device, and it needs to be coupled to something which, as it rises with rising water levels, puts a lid on top of the source of water. You need to have a negative feedback signal there saying, "Ooh, I've gotten it into my head that I, the neuron, want to release this amount of neurotransmitter into the synapse." And it would be nice to know if I really did do that.
Or I, this endocrine gland, wants to have this level of this hormone in the bloodstream. Is it here and thus keep secreting, or is it time to reach threshold and shut it off? You have to have negative feedback in these cases, and there turns out to be some very subtle, interesting ways in which that occurs in both the nervous system and endocrine system.
Okay, back to our neuron before with its little crown here. And whether this is a neuron releasing one type of neurotransmitter or the weird, specialized ones with two types, whatever, this neuron has gotten into its head that it wants to release 11D units of neurotransmitter into the synapse. And it would like to know, did 11D units really get there?
I need a feedback signal. And what you see is sitting on the axon terminal is a receptor for the neurotransmitter you're releasing. That's crazy. The receptors are on this side, on the dendritic side of the next neuron in line. That's how they're talking. What are you doing having a receptor on the axon terminal for this neurotransmitter?
This is the bookkeeper. As the neurotransmitter comes pouring out, one-tenth of 1% of it wanders around this way and binds to this receptor, which has to have a rule, saying, "Whatever number of molecules of neurotransmitter is binding here, multiply by 10 to the fourth, and that will tell you how much came out entirely." And if it's not at the level you want, start packing these vesicles with more neurotransmitter or less oil.
El autorreceptor
You get a feedback signal. You have receptors that are measuring the thing that their cell secretes in a regulatory way. A term in the business: an autoreceptor. An autoreceptor, making perfect sense there. A presynaptic autoreceptor, a way of doing bookkeeping. And this is very logical, very straightforward. Things get more complicated when we have our scenario of the same neuron releasing two types of neurotransmitters from the same vesicle, because now you want to get feedback information on both, because almost certainly you are not just interested in how much of A you're pumping out and how much of B, but the ratio of the two.
So you've got to have two types of autoreceptors here that could integrate the information that they're getting, turning into a signal of not just more of this one or less of that, but do whatever to correct the ratio of the two. So that's happening, that's totally cool in terms of complicated negative feedback stuff.
Then an additional type of negative feedback subtlety going on in the nervous system. So what did we learn from Dale's great-great-grandparents in terms of action potential: neurotransmitter comes out from here, floats across the synapse, does something to this neuron, and something changes in this neuron as a result of binding to these receptors, and hooray, this neuron has just talked to this neuron.
This is where the neurotransmitters are. This is where the receptors are. Information flows in this direction. And the complication came in as people began to learn there's a whole bunch of weird neurotransmitters that are made in the dendritic spine, in totally the wrong place, and they're released not in response to an action potential, because you don't get action potentials on the dendrites.
Los neurotransmisores retrógrados
It's released at various points, and they travel backwards. They go in the wrong direction across the synapse. They are, quote, "retrograde neurotransmitters." And what they're often doing is serving a negative feedback signal on, "Okay." Okay. "We're very, very excited here. You may want to tone things down a little bit." Or, "We're doing fine here.
If you want to dump more stuff on it, go." It's a feedback loop this way with these bizarre, bizarre, unconventional neurotransmitters that are made in the wrong place and go in the wrong direction. As it turns out, chemically, structurally, they're often quite bizarre. And here's an example of how that system works, which is so elegant, you can't believe it.
ATP: la moneda energética de la célula
Okay, I assume most people in here at least are familiar with ATP. ATP is the energy currency of the cell. If that's just saturated you, that's plenty enough. ATP is the molecule that's the source of energy for cells. So we have two circumstances here. Suppose this is a cell that is well-fed and has had so many nutrients.
It is full of ATP. It's got so much ATP that some of it dribbles at the dendritic spine and goes floating backward. And, bizarre as hell, nobody believed this at first. There are ATP receptors. And what is this neuron saying to this neuron?
"I have so much energy that I can afford to drool out some of my ATP. We're doing great here. If you've got something very, very, very excitatory to say to us, go for it. Dump as much as you want because we've got things under control here." In contrast, suppose this is a neuron that's running into trouble energetically.
It's running out of energy because it's had a stroke or a seizure, is using up its energy at a crazy high rate. It's running out of energy. Do not freak out at this biochemistry. This is new to you. This is not pertinent. So what happens when you're running through your energy storage?
La adenosina y la crisis energética
Your ATP is broken down to ADP, which is broken down to AMP, which eventually is broken down to adenosine. Adenosine. If you have a neuron that's got lots of adenosine and not much ATP, this is a neuron that's having a major energy crisis. So what happens now?
As adenosine builds up, it goes backwards as a retrograde neurotransmitter and binds to adenosine receptors here. And what is it saying? "We're exhausted here. We can't do anything. I don't care how exciting your news is. Stop sending us neurotransmitter. Decrease the release of all." We've got a feedback loop here by which the energetic state of this neuron can modulate how loudly this neuron is yelling at it.
And that's totally beautiful. This is the neurobiology of why you should not take exams when you haven't eaten for three days. Here's the neurobiology of why neuronal communication is sensitive to neuronal energetics, to energy availability. Very interestingly, in most individuals who have a grand mal epileptic seizure, neurons are firing like crazy. So that ATP gets broken up, broken up, broken down, and it is the adenosine building up in this exhausted neuron floating backwards telling, "Stop releasing neurotransmitter." It's this buildup of adenosine which typically plays the role in finally stopping the seizure and terminating it.
Okay, so beautiful negative feedback regulation. Neurons measure their own neurotransmitter release rates by having receptors of their own right here. And then we've got all these weird retrograde neurotransmitters that communicate modulatory stuff. This is a way for this neuron to tell this neuron how things are going here. And sometimes the message is, "We're great.
Yell as loud as you want." And sometimes it's saying, "If there's a way you could like tone it down, we're falling on our faces here." So beautifully elegant regulation there in ways nobody ever anticipated. Now, negative feedback regulation complications going on in endocrine systems. Here's where we always get back to the toilet bowl model.
El modelo del depósito del inodoro
You've got a threshold. You know how high you want the tank to fill up with water, and you have to have a means of measuring how much water there is in the tank — your flotation device. And as it reaches threshold, it's got to be set up that the flotation device being here shuts off the water spout, and you've got a negative feedback system, and it works wonderfully, and that's great.
And here we see a perfect example of this: you are the hypothalamus, and you've decided you want to start a whole stress response. So you secrete CR so that these guys secrete ACT so that the adrenals secrete glucocorticoids, and you want to know how much glucocorticoids there are in the bloodstream, because for this type of stressor you've gotten into your head, "We want this much glucocorticoids," whereas for this much milder stressor, you want this much.
You've got to have a threshold, and you've got to have a means of measuring glucocorticoid levels in the bloodstream and have a negative feedback signal. And what you see is, throughout much of the brain, you see totally straightforward: the more glucocorticoids you pump into the bloodstream of an individual, the louder of a negative feedback sign, the more you're pushing up the levels of the water in the tank.
Dallman y la retroalimentación sensible a la tasa
And the higher the levels, the more you shut off subsequent CR release, just negative feedback. And then in the 60s, an endocrinologist named Mary Dallman discovered there's an additional type of negative feedback going on. And this is right in the hypothalamus. And there, the brain is not caring about how much glucocorticoids there are in the bloodstream.
It cares about how fast they have been rising. Rather than paying attention to the level, it's paying attention to the rate. So that when it's rapidly increasing, you tone down CR, and that's occurring in the first two minutes of a stress response, just to finetune stuff. And then two minutes in or so, you switch over to level-sensitive feedback.
And it's just how much is there. And the more there is, the closer we are to threshold, and it's time to shut this off. These are the same neurons that some of the time they're measuring how much glucocorticoid there is in the bloodstream. Some of the time they're measuring how much has it changed in the last minute?
This produces two totally amazing sort of challenges here. The first off is, how do you code for this? How do you code that sometimes this cell, this neuron that's a source of the feedback signal?
It cares about how much versus the rate of change. What's the nuts and bolts of that? And is it being so literal about the rate of change that, as far as this part of the brain is concerned, going from one unit of glucocorticoids to two in the next minute is exactly the same as going from 101 to 102?
A huge, complicated feature in terms of what the wiring is for that. Not fully understood yet, but fine feedback some of the time very early in a stress response. You're not so concerned with the levels. You just want to know that it's rising fast enough, and once you get up towards plateau, then you're caring about the levels, the switch back and forth.
A very cool thing about that study, by this person, Mary Dallman, who was the first fully tenured neuroprofessor, a woman, at UCSF, was chair of the department there for years, a wonderful person who was a mentor and friend who died during the pandemic. But here was the coolest thing of all, which is: when she first published about level-sensitive and rate-sensitive negative feedback, it wasn't from an experiment; it was a theoretical paper.
Her origins were in math, and she did this whole informational control analysis, and saying, just from what we know about glucocorticoids and what happens, there's got to be two different types of feedback. There's got to be this domain that does the normal familiar hormone stuff. But also to explain these findings, there's got to be a domain where for the first couple of minutes it's concerned with rate — and like, who knows — but this is what my model suggests, and then everybody on Earth went out, including her, and showed this is exactly what was going on there.
This was one of the most beautiful examples of modeling and simulation, and this was back when computers were the size of Rhode Island. This was her just sitting with a pad of paper and a pen and an abacus or something, figuring out, "It's got to work like this. This is the only way to explain what I'm seeing in my experiments," and that turning out to be exactly the case.
Tell you what, before we get into the next additional complication, let's call it a day at this point, and we will pick up with how both neurons and endocrine cells change the number of their receptors under different circumstances. They will change the workings of the receptors under certain circumstances. And getting to our most important concept in here: some of the time a neurotransmitter or a hormone is not having an effect.
What it is doing is changing the ability of some other neurotransmitter or hormone to have an effect, rather than a causal role, a modulatory role. And just to give a dramatic foreshadowing as to the concept that will get pulled into here: sometimes we're saying, "What's the effect of this neurotransmitter or hormone?" Well, it depends.
It depends on whether this other one is present or not. We have a neurotransmitter-neurotransmitter interaction or a hormone-hormone interaction. And you know what that looks like?
Muy bien. Pasamos ahora a un repaso amplio de algunos temas más avanzados de neurobiología, endocrinología y neuroendocrinología. Y es un paso completamente obligado, porque lo que hemos cubierto hasta aquí, gracias a la puesta al día, gracias a Biocore, gracias al troncal de HumBio, lo que sea, es un montón de hechos básicos sobre cómo funcionan el sistema nervioso y las hormonas.
Y claro, lo que pasa llegados a este punto es que luego descubres que eso es así la mayor parte del tiempo. Así que lo que vamos a mirar son algunos dogmas paralelos que todos aprendemos sobre el cerebro y las hormonas, y su inversión: ver que lo que pasa de verdad es mucho más complicado, mucho más interesante, permite mucha más sutileza informativa comunicada por neuronas y por hormonas, todo eso, y explica mucho mejor sobre todo por qué tú eres distinto de la persona sentada a tu lado.
Las dos leyes de Dale
Muy bien. Lo primero de todo: traemos a uno de los dioses de la neurociencia, Dale. Dale, a principios del siglo pasado, era el legislador. Era el que subía al monte y bajaba con los mandamientos en piedra: las dos leyes de Dale sobre el funcionamiento de las neuronas. Las dos leyes. La primera es: cuando una neurona tiene un potencial de acción, libera el mismo neurotransmisor por cada uno de sus terminales axónicos, cada uno de sus 50.000.
La primera ley se rompe: dos transmisores en el mismo terminal
Vale, eso fue una observación asombrosa, y la gente lo ha aprendido durante siglos. Y la complicación, el matiz, que es inmensamente interesante, es que a veces la versión más formal y estricta de la ley número uno de Dale es incorrecta: a veces hay neuronas que desde cada terminal axónico liberan dos tipos de neurotransmisores, los mismos dos en cada caso, varios neurotransmisores.
Y lo que vemos aquí en este diagrama son puntos azules y puntos naranjas. Vemos salir dos neurotransmisores distintos. ¡Herejía! ¡Herejía! Los dos en la misma vesícula. En algunos casos, el escenario de varios neurotransmisores es que tienes una vesícula con los azules y una vesícula con los rojos, o, y aquí tenemos los receptores para los dos tipos distintos.
Totalmente asombroso. ¿Es totalmente asombroso? Bueno, además de mostrar eso, hay que decir la ley de San Dale: «Sea cual sea el neurotransmisor o la combinación de neurotransmisores que salga de este terminal axónico, saldrá también de todos los demás.» Vale, ese es el Dale del siglo XXI. Pero se ven varios neurotransmisores. ¿Y eso de qué va?
Dos clases químicas y dos velocidades
Y lo que se ve es que suelen ser dos clases estructurales, dos estructuras químicas de neurotransmisor muy distintas: los que están hechos de péptidos frente a los que no. Si esto es terreno desconocido, ignóralo por completo: simplemente son estructuralmente distintos. Suelen tener funciones distintas. Suelen funcionar a velocidades distintas, cosas de ese estilo.
Así que eso amplía de golpe muchísimo la paleta de neurotransmisores que uno tiene. Si puedes estar liberando varios mensajeros con efectos distintos, uno de ellos interaccionará con su receptor y cambiará los eventos iónicos en una fracción de segundo. El otro cambiará la transcripción de genes a lo largo del día siguiente. Tienes una paleta mucho, mucho más rica de maneras en que una neurona puede hablarle a otra.
El equivalente endocrino: la cascada hasta los glucocorticoides
Ahora, el equivalente exacto en el sistema endocrino, ¿cuál es? Esto no es un Dale, Dale, pero es algo equivalente: vale, el hipotálamo libera una hormona que hace que la hipófisis libere su hormona correspondiente. La CR, la hormona liberadora de corticotropina, provoca la liberación de la ACT, la hormona corticotropa. Esta hormona liberadora hipotalámica es la que le dice a la hipófisis que libere su hormona, y esa irá después a las glándulas suprarrenales a decirles que liberen glucocorticoides.
Esa es la cascada básica. El hipotálamo tiene una hormona liberadora que libera una de las hormonas hipofisarias, la media docena más o menos que hay en la hipófisis anterior. Así funciona. Y a principios de los ochenta, cuando la gente empezaba a aprender sobre la CR, cuando se resolvió por primera vez su estructura —y ese era el laboratorio en el que yo hacía el postdoc—, la gente encontró algo totalmente raro: que en el hipotálamo había más de un tipo de CR.
Más de una hormona capaz de liberar ACTH
Había más de un tipo de hormona capaz de hacer que la hipófisis liberara ACT. Y a la gente le costó una barbaridad averiguar que la CR de tipo 2 era en realidad la hormona oxitocina saliendo del hipotálamo. La vasopresina era otra cosa que secreta ACT, otra que podía hacer que la hipófisis secretara eso. La adrenalina, la noradrenalina, la CR, junto con un montón de estas otras hormonas que en conjunto podían liberar ACT.
Vale. Dios mío, ¿y por qué esta multiplicidad? ¿Y exactamente el mismo tema que aquí? Empiezas a ganar control, distintas escalas de tiempo, distintos mecanismos, todo eso. Lo que la gente empezó a ver fue que para un tipo de estresor el hipotálamo secretaba CR, oxitocina y adrenalina. Para un tipo de estresor distinto, CR, vasopresina y adrenalina.
El hipotálamo codifica qué tipo de estresor es
Para otro, había una codificación en el hipotálamo de qué tipo de estresor era: estresor de que estás psicológicamente estresado porque te han metido en un entorno nuevo y desconocido; estresor de que acabas de romperte un miembro; estresor, un montón de lo que sea: psicológico, somático. Y resultó que había una codificación de las entradas al hipotálamo hacia el grupo de neuronas que liberan oxitocina, el grupo de neuronas de vasopresina, el grupo de las de CR, todo eso.
Y tenías codificación para esa especificidad enorme y asombrosa. Era una pasada. La gente se pasó la década entera resolviendo eso. Lo interesante de esto es que, ya sabes, cuando es CR más esto, liberas ACT, pero le haces a la presión arterial algo muy distinto de lo que le haces cuando tienes CR con esto otro, le haces algo a la frecuencia cardiaca.
Tienes codificación para los efectos adicionales. Sí. Libera las dos, y tienen escalas de tiempo distintas, mecanismos de acción distintos. Libera esta orquestación: una orquestación específica para cada estresor, estrés psicológico frente a físico, todo eso. Un estrés de temperatura frente a un estrés de presión arterial, frente a... Y obtienes una codificación distinta, y en algún punto de todo eso, para complicarle la vida a todo el mundo, también hay una hormona inhibidora de la corticotropina que desempeña un papel.
Así que todo este conjunto, toda esta orquestación, solo para conseguir un control más sutil, porque en conjunto todas liberan ACT en distinta medida, con escalas de tiempo distintas, y además hacen cosas adicionales. Más especificidad en ese terreno. Y ahora otra manera en que el pobre Dale se va a ir al garete: la distribución espacial. Lo que acabamos de ver es que las neuronas son mucho más sofisticadas en cuanto al mensajero que liberan.
Pueden tener combinaciones. Los sistemas neuroendocrinos son mucho más complicados. Pueden estar regulando una hormona a través de múltiples mensajeros posibles y de combinaciones y todo ese tipo de cosas. Ahora vemos algo sobre el asunto espacial, tanto en el sistema nervioso como en el endocrino. Sistema nervioso. ¿Cuál es el dogma?
La segunda ley: el potencial de acción de todo o nada
A todos os lo enseñaron, es lo que todos aprendimos a decir desde que nacimos: «Vale.» Una vez que una neurona se excita lo bastante para tener un potencial de acción, el potencial de acción funciona de manera —dilo conmigo— de todo o nada. Es el mismo potencial de acción saltando por el axón, y el mismo en esta primera división en dos ramas, y el mismo en la siguiente ramificación después de esa.
Todo eso. Y es el mismo potencial de acción el que se propaga hasta los 50.000 terminales axónicos. Aquí vuelve Dale con su segunda ley granítica ante la que todos nos postramos, diciendo que cuando tienes un potencial de acción, el mismo potencial de acción baja disparado por cada una de las ramas y, como vimos, libera el mismo neurotransmisor o la misma combinación de neurotransmisores.
Y su segunda ley es: «El potencial de acción es de todo o nada, se regenera.» Y el mismísimo potencial de acción que empezó aquí se ve exactamente igual estés aquí, aquí o aquí. Y claro, esa resulta ser más complicada, porque resulta que puedes depositar densidades distintas de canales iónicos —canales de calcio, por ejemplo— en distintos puntos de ramificación, y las neuronas lo hacen.
Cada bifurcación, su propio potencial de acción
Y lo que eso hace —puedes hacerlo aquí, puedes hacerlo justo abajo en los extremos— es individualizar, afinar, poner accesorios, hacer especial el potencial de acción que baja por esta rama frente al que baja por esa otra. Y lo que verás es que, según la densidad de algunos de estos canales iónicos de aquí, la forma del potencial de acción, su anchura, variará.
¿Cuál es la consecuencia? Cuánto dura, o la forma del periodo de recuperación, cambiará. La forma de todo el conjunto depende de por qué rama baje y de la densidad de los distintos tipos de canales que haya ahí. ¿Cómo regulan eso las neuronas?
Eso es asombroso, y probablemente lo miremos más adelante esta semana con lo de la emergencia, todo eso. ¿Cómo sabe tener tantos de estos canales en esta para obtener este tipo de potencial de acción, frente a tantos, otros tantos, en esta otra para obtener esta forma?
¿De dónde viene esa regulación? Lo principal es que Dale se equivocaba. No es exactamente la misma acción, pero lo principal es que las neuronas tienen este control informativo sobre cuán fuerte y cuán larga es la señal que baja por las distintas ramas. Y hay incluso circunstancias en las que una neurona parece poder decidir «ahora mismo no baja nada por esta rama», apagar ese punto de bifurcación.
Así que hay regulación a ese nivel, mucha más regulación de la que nadie había anticipado. Y Dale revolviéndose en su tumba por una segunda razón: un potencial de acción llega a todos los terminales axónicos, puede que ni siquiera eso todo el tiempo, pero hay regulación por el camino; distintas ramas gritan su excitación de maneras cualitativamente distintas. Ahora el equivalente exacto en el sistema endocrino.
Ah, un asunto espacial muy simple. El hipotálamo libera su hormona, la CR por ejemplo, que va a la hipófisis y libera ACT. Muy simple. La hipófisis es, la hipófisis anterior es esta glándula de una complejidad mareante, y libera un montón de hormonas. Libera ACT, que es la que acabamos de ver. Otra vez, si esto te desborda, vete a la sección de puesta al día.
La hipófisis anterior: cinco tipos de célula
Libera la hormona luteinizante, la foliculoestimulante, la hormona del crecimiento, la prolactina, la estimulante del tiroides, toda una serie de ellas. Y no todas las células de la hipófisis anterior tienen la capacidad de liberar todas estas distintas... Hay células especializadas en la hipófisis. Las corticotropas liberan ACT, las gonadotropas, las somatotropas, las lactotropas, las tirotropas. Hay tipos celulares distintos que fabrican su hormona característica y la secretan al torrente sanguíneo en respuesta a que el hipotálamo mande abajo su hormona característica para estimularlas.
La CR estimulando a las corticotropas para que liberen ACT. La hormona liberadora de la hormona del crecimiento estimulando a las somatotropas para que liberen la hormona del crecimiento. Vale, estupendo. Tenemos un montón, al menos cinco tipos celulares distintos en la hipófisis anterior. Y la pregunta espacial obvia ahora: ¿tienes el vecindario de las somatotropas?
¿Tienes el vecindario de las tirotropas? ¿Tienes subpartes especializadas? No. Lo que ves en su lugar es simplemente un dispersarse de todos los subtipos. Una pregunta muy pertinente es qué clase de vecindario tiene esta célula somatotropa en concreto, esta tirotropa en concreto, como se muestra aquí, así. Aquí hay una célula corticotropa que resulta estar en un vecindario completamente rodeado de gonadotropas.
El efecto de vecindad
En cambio, en esta otra parte de la hipófisis hay una célula corticotropa rodeada de nada más que somatotropas. Y lo que ves es que, para la misma cantidad de CR que baja, estas dos difieren en cuánta ACT bombean, difieren en su sensibilidad a la señal. Control local a ese nivel. Y lo que trae tu hoja de mano es el diagrama más espantoso imaginable: ignóralo de inmediato.
Solo muestra, con uno de estos tipos de aquí, cuáles son todas las señales locales que vienen de los tipos celulares de alrededor. Porque no solo vas a tener una hilera de gonadotropas o varias hileras, sino una hilera de una mezcla de ellas, todo eso. ¿Qué tipo de señales llegan ahí modulando su sensibilidad?
Dios mío, qué control tan increíble. Un control increíble, porque la misma señal hipotalámica tendrá un impacto distinto sobre la liberación de hormonas hipofisarias según en qué parte de la hipófisis, en qué pequeño vecindario local, estés incidiendo. Vale, estupendo. Eso es totalmente fascinante. Pero espera: ¿no estás simplemente volcando tu hormona hipotalámica por toda la hipófisis anterior?
El sistema portal hipotálamo-hipofisario
Así que estás estimulando a las corticotropas muy sensibles y también estás estimulando a las menos sensibles. ¿Y qué ha encontrado la gente desde entonces? El trabajo de un tal John Porter, que muestra: vale, tienes tu hipotálamo y tienes tu hipófisis y tiene este aspecto. Y tienes un sistema vascular, vasos sanguíneos que bajan, llamado sistema portal hipotálamo-hipofisario, que lleva estas hormonas hipotalámicas abajo hasta la hipófisis.
Porter: cada capilar con su concentración
Y lo que él mostró es que hilos microscópicos individuales de estos capilares tienen concentraciones distintas de la misma hormona hipotalámica. El hipotálamo es capaz de desviar de forma diferencial la hormona más en dirección a este tipo de corticotropa o a ese tipo de corticotropa, ese tipo de cosas. Y tienes control a ese nivel.
Y yo me pasé dos años de mi vida, como postdoc, aprendiendo a canular uno solo de esos vasos sanguíneos para mirarlo. Y eso fue lo más emocionante desde la neuroanatomía. Pero lo que ves es todo un nivel adicional de regulación aquí. Así que una neurona no solo manda un potencial de acción.
Puede matizarlo. Puede amasarlo. Se le da forma a qué clase de señal está mandando a las distintas neuronas de aguas abajo. Un hipotálamo no solo manda una señal de secretar ACT. Puede controlar: ¿la estoy mandando a los vecindarios más sensibles o a los menos sensibles?
Y es lo mismo para cada uno de estos. Bien. Siguiente cosa, siguiente cosa en la que vemos elaboraciones. Y en cuanto a repasar todo esto, no os lo memoricéis. Solo, conceptualmente, haceos una idea de qué está pasando: que tienes heterogeneidad de respuesta, y en el hipotálamo tienes heterogeneidad de qué clase de potencial de acción llega al final, y tienes control a este nivel, y todavía se entiende mal en los dos terrenos.
La regulación por retroalimentación negativa
Siguiente cosa, siguiente cosa que mirar —mirando la hora—, siguiente cosa a considerar: la regulación por retroalimentación negativa. Vale, la regulación por retroalimentación negativa. Tiras de la cadena del inodoro y ahora vuelves a llenar el depósito, y necesitas una señal de retroalimentación negativa que te diga cuándo está lleno el depósito. Necesitas una manera de medir la cantidad de agua que se va metiendo en el depósito.
Un flotador, y tiene que estar acoplado a algo que, a medida que sube con el agua que sube, ponga una tapa encima de la fuente de agua. Necesitas tener ahí una señal de retroalimentación negativa que diga: «Ah, se me ha metido en la cabeza que yo, la neurona, quiero liberar esta cantidad de neurotransmisor en la sinapsis.» Y estaría bien saber si de verdad lo he hecho.
O yo, esta glándula endocrina, quiero tener este nivel de esta hormona en el torrente sanguíneo. ¿Está ya ahí y por tanto sigo secretando, o va siendo hora de alcanzar el umbral y cerrarlo? Tienes que tener retroalimentación negativa en estos casos, y resulta que hay algunas maneras muy sutiles e interesantes en que eso ocurre, tanto en el sistema nervioso como en el endocrino.
Vale, volvemos a nuestra neurona de antes con su coronita aquí. Y da igual que sea una neurona que libera un tipo de neurotransmisor o las raras y especializadas que tienen dos tipos, lo que sea: esta neurona se ha metido en la cabeza que quiere liberar 11D unidades de neurotransmisor en la sinapsis. Y le gustaría saber si de verdad llegaron 11D unidades.
Necesito una señal de retroalimentación. Y lo que ves es que, sentado en el terminal axónico, hay un receptor para el neurotransmisor que estás liberando. Eso es una locura. Los receptores están en este lado, en el lado dendrítico de la siguiente neurona de la cadena. Así es como hablan. ¿Qué haces tú teniendo un receptor en el terminal axónico para este neurotransmisor?
Este es el contable. A medida que el neurotransmisor sale a chorros, una décima parte del 1 % de él anda por aquí y se une a este receptor, que tiene que tener una regla, y la regla dice: «El número de moléculas de neurotransmisor que se una aquí, multiplícalo por 10 a la cuarta, y eso te dirá cuánto salió del todo.» Y si no está al nivel que quieres, empieza a llenar estas vesículas con más neurotransmisor o con menos aceite.
El autorreceptor
Tienes una señal de retroalimentación. Tienes receptores que están midiendo lo que su propia célula secreta, y lo hacen de forma reguladora. Un término del oficio: un autorreceptor. Un autorreceptor, que tiene todo el sentido ahí. Un autorreceptor presináptico, una manera de llevar la contabilidad. Y esto es muy lógico, muy directo. Las cosas se complican cuando tenemos nuestro escenario de la misma neurona liberando dos tipos de neurotransmisores desde la misma vesícula, porque ahora quieres información de retroalimentación sobre los dos, porque casi con seguridad no te interesa solo cuánto de A estás bombeando y cuánto de B, sino la proporción entre los dos.
Así que tienes que tener dos tipos de autorreceptores ahí que puedan integrar la información que reciben y convertirla en una señal que no sea solo más de este o menos de aquel, sino hacer lo que sea para corregir la proporción entre los dos. Así que eso está pasando, y eso es una pasada en cuanto a retroalimentación negativa complicada.
Luego hay un tipo adicional de sutileza de la retroalimentación negativa que ocurre en el sistema nervioso. Entonces, ¿qué aprendimos de los tatarabuelos de Dale en cuanto al potencial de acción? El neurotransmisor sale de aquí, flota por la sinapsis, le hace algo a esta neurona, y algo cambia en esta neurona como resultado de unirse a estos receptores, y hurra, esta neurona acaba de hablarle a esta neurona.
Aquí están los neurotransmisores. Aquí están los receptores. La información fluye en esta dirección. Y la complicación llegó cuando la gente empezó a descubrir que hay un montón de neurotransmisores raros que se fabrican en la espina dendrítica, en un sitio totalmente equivocado, y que no se liberan en respuesta a un potencial de acción, porque en las dendritas no hay potenciales de acción.
Los neurotransmisores retrógrados
Se liberan en distintos puntos, y viajan hacia atrás. Van en la dirección equivocada a través de la sinapsis. Son, entre comillas, «neurotransmisores retrógrados». Y lo que suelen hacer es servir de señal de retroalimentación negativa del estilo: «Vale.» Vale. «Aquí estamos muy, muy excitados. Quizá quieras bajar un poco el tono.» O: «Aquí vamos bien.
Si quieres volcarle más cosas, adelante.» Es un bucle de retroalimentación hacia atrás, con estos neurotransmisores raros, raros, poco convencionales, que se fabrican en el sitio equivocado y van en la dirección equivocada. Y resulta que, químicamente, estructuralmente, a menudo son bastante raros. Y aquí va un ejemplo de cómo funciona ese sistema, que es tan elegante que no te lo puedes creer.
ATP: la moneda energética de la célula
Vale, supongo que la mayoría de la gente que está aquí al menos conoce el ATP. El ATP es la moneda energética de la célula. Si con eso ya has tenido bastante, es más que suficiente. El ATP es la molécula que es la fuente de energía de las células. Así que tenemos dos circunstancias aquí. Supón que esta es una célula bien alimentada, que ha tenido muchísimos nutrientes.
Está llena de ATP. Tiene tanto ATP que parte de él gotea en la espina dendrítica y se va flotando hacia atrás. Y, raro como el demonio, al principio nadie se lo creía. Hay receptores de ATP. ¿Y qué le está diciendo esta neurona a esta otra?
«Tengo tanta energía que me puedo permitir babear un poco de mi ATP. Aquí vamos genial. Si tienes algo muy, muy, muy excitatorio que decirnos, adelante. Suelta todo lo que quieras, porque aquí tenemos las cosas bajo control.» En cambio, supón que esta es una neurona que está teniendo problemas energéticos.
Se está quedando sin energía porque ha sufrido un ictus o una crisis epiléptica, está gastando su energía a una velocidad disparatada. Se está quedando sin energía. No te asustes con esta bioquímica. Esto es nuevo para ti. Esto no viene al caso. Entonces, ¿qué pasa cuando te estás quedando sin tus reservas de energía?
La adenosina y la crisis energética
Tu ATP se rompe en ADP, que se rompe en AMP, que con el tiempo se rompe en adenosina. Adenosina. Si tienes una neurona que tiene mucha adenosina y poco ATP, es una neurona que está teniendo una crisis energética de las gordas. ¿Y qué pasa ahora?
A medida que la adenosina se acumula, va hacia atrás como neurotransmisor retrógrado y se une a los receptores de adenosina de aquí. ¿Y qué está diciendo? «Aquí estamos agotados. No podemos hacer nada. Me da igual lo emocionante que sea tu noticia. Deja de mandarnos neurotransmisor. Baja la liberación de todo.» Tenemos aquí un bucle de retroalimentación por el que el estado energético de esta neurona puede modular con cuánta fuerza le está gritando esta otra.
Y eso es totalmente precioso. Esta es la neurobiología de por qué no deberías hacer un examen cuando llevas tres días sin comer. Esta es la neurobiología de por qué la comunicación neuronal es sensible a la energía de las neuronas, a la disponibilidad de energía. Muy interesantemente, en la mayoría de las personas que sufren una crisis epiléptica de tipo gran mal, las neuronas disparan como locas. Así que ese ATP se rompe, se rompe, se rompe, y es la adenosina que se acumula en esta neurona agotada, flotando hacia atrás, la que dice: «Deja de liberar neurotransmisor.» Es esta acumulación de adenosina la que desempeña típicamente el papel de parar por fin la crisis y terminarla.
Vale, una retroalimentación negativa preciosa. Las neuronas miden sus propias tasas de liberación de neurotransmisor teniendo receptores propios aquí mismo. Y luego tenemos todos estos raros neurotransmisores retrógrados que comunican cosas moduladoras. Esta es una manera de que esta neurona le diga a esta otra cómo van las cosas por aquí. Y a veces el mensaje es: «Estamos genial.
Grita tan fuerte como quieras.» Y a veces está diciendo: «Si hubiera alguna forma de que bajaras un poco el tono, aquí nos estamos cayendo de morros.» Una regulación preciosa y elegante, en maneras que nadie había anticipado. Ahora, complicaciones de la retroalimentación negativa en los sistemas endocrinos. Aquí es donde siempre volvemos al modelo del inodoro.
El modelo del depósito del inodoro
Tienes un umbral. Sabes hasta qué altura quieres que se llene de agua el depósito, y tienes que tener una manera de medir cuánta agua hay en el depósito: tu flotador. Y cuando alcanza el umbral, tiene que estar montado de forma que el flotador, al estar aquí, cierre el grifo del agua, y tienes un sistema de retroalimentación negativa, y funciona de maravilla, y estupendo.
Y aquí vemos un ejemplo perfecto de esto: tú eres el hipotálamo y has decidido que quieres arrancar toda una respuesta de estrés. Así que secretas CR para que estos secreten ACT para que las suprarrenales secreten glucocorticoides, y quieres saber cuántos glucocorticoides hay en el torrente sanguíneo, porque para este tipo de estresor se te ha metido en la cabeza: «Queremos esta cantidad de glucocorticoides», mientras que para este estresor mucho más leve quieres esta otra cantidad.
Tienes que tener un umbral, y tienes que tener una manera de medir los niveles de glucocorticoides en el torrente sanguíneo y tener una señal de retroalimentación negativa. Y lo que ves es que, en buena parte del cerebro, ves algo totalmente directo: cuantos más glucocorticoides le metes en el torrente sanguíneo a un individuo, más fuerte es la señal de retroalimentación negativa, más estás subiendo el nivel del agua del depósito.
Dallman y la retroalimentación sensible a la tasa
Y cuanto más altos son los niveles, más cortas la liberación posterior de CR, simple retroalimentación negativa. Y luego, en los sesenta, una endocrinóloga llamada Mary Dallman descubrió que hay un tipo adicional de retroalimentación negativa en marcha. Y está justo en el hipotálamo. Y ahí el cerebro no está pendiente de cuántos glucocorticoides hay en el torrente sanguíneo.
Está pendiente de a qué velocidad han estado subiendo. En vez de fijarse en el nivel, se fija en la tasa. De modo que cuando están subiendo rápido, bajas la CR, y eso ocurre en los dos primeros minutos de una respuesta de estrés, solo para afinar las cosas. Y luego, a los dos minutos más o menos, cambias a la retroalimentación sensible al nivel.
Y es simplemente cuánto hay. Y cuanto más hay, más cerca estamos del umbral, y va siendo hora de cerrar esto. Son las mismas neuronas que una parte del tiempo están midiendo cuánto glucocorticoide hay en el torrente sanguíneo. Y otra parte del tiempo están midiendo cuánto ha cambiado en el último minuto.
Esto plantea dos retos totalmente asombrosos. El primero es: ¿cómo codificas esto? ¿Cómo codificas que a veces esta célula, esta neurona que es una fuente de la señal de retroalimentación?
Le importa cuánto hay frente a la tasa de cambio. ¿Cómo funciona eso por dentro, tornillo a tornillo? ¿Y está siendo tan literal con la tasa de cambio que, en lo que a esta parte del cerebro respecta, pasar de una unidad de glucocorticoides a dos en el minuto siguiente es exactamente lo mismo que pasar de 101 a 102?
Una característica enorme y complicada en cuanto a cómo está cableado eso. Todavía no se entiende del todo, pero es una retroalimentación fina: una parte del tiempo, muy al principio de una respuesta de estrés, no te preocupan tanto los niveles, solo quieres saber que está subiendo lo bastante rápido, y una vez que llegas cerca de la meseta te empiezan a importar los niveles, el ir y venir de un canal al otro.
Una cosa muy bonita de aquel estudio, de esta persona, Mary Dallman, que fue la primera catedrática de neurociencia plenamente titular, una mujer, en la UCSF, y que fue directora del departamento allí durante años, una persona maravillosa que fue mentora y amiga y que murió durante la pandemia. Pero lo más bonito de todo era esto: cuando publicó por primera vez sobre la retroalimentación negativa sensible al nivel y a la tasa, no salió de un experimento; era un artículo teórico.
Sus orígenes estaban en las matemáticas, e hizo todo este análisis de control informacional, diciendo: solo con lo que sabemos de los glucocorticoides y de lo que pasa, tiene que haber dos tipos distintos de retroalimentación. Tiene que haber este dominio que hace lo de siempre, lo familiar, con las hormonas. Pero también, para explicar estos resultados, tiene que haber un dominio que durante el par de minutos iniciales se ocupa de la tasa —y quién sabe—, pero esto es lo que sugiere mi modelo. Y luego todo el mundo salió, incluida ella, y demostró que era exactamente lo que estaba pasando ahí.
Este fue uno de los ejemplos más bonitos de modelización y simulación, y esto era en una época en la que los ordenadores eran del tamaño de Rhode Island. Esto era ella sentada con un bloc de papel, un bolígrafo y un ábaco o algo así, averiguando: «Tiene que funcionar así. Esta es la única manera de explicar lo que veo en mis experimentos», y resultando ser exactamente el caso.
Te digo una cosa: antes de meternos en la siguiente complicación adicional, lo dejamos aquí por hoy y retomaremos con cómo las neuronas y las células endocrinas cambian el número de sus receptores en distintas circunstancias. Cambiarán el funcionamiento de los receptores en ciertas circunstancias. Y llegamos a nuestro concepto más importante aquí: una parte del tiempo, un neurotransmisor o una hormona no está teniendo un efecto.
Lo que está haciendo es cambiar la capacidad de otro neurotransmisor u otra hormona de tener un efecto: en vez de un papel causal, un papel modulador. Y solo para dar un anticipo dramático del concepto que se va a meter aquí: a veces decimos «¿cuál es el efecto de este neurotransmisor o de esta hormona?». Pues depende.
Depende de si este otro está presente o no. Tenemos una interacción neurotransmisor-neurotransmisor o una interacción hormona-hormona. ¿Y sabéis qué aspecto tiene eso?
16 · Neuroendocrinología avanzada (2)
El mensaje depende de quien escucha
Receptores que cambian de número y de piezas, bolsillos que multiplican efectos, y una sola respuesta para casi todo: depende.
Lectura de 1 minuto
- Una señal no vale solo por cuánto se libera: importa igual cuánto la escucha el receptor.
- Los receptores suben y bajan de número —autorregulación—: es la mitad «escuchar» de la ecuación.
- En la diabetes de tipo 2, unas células adiposas llenas retiran sus receptores de insulina y la glucosa se queda dando vueltas por la sangre.
- Un receptor no es una pieza única: son complejos de cinco o seis proteínas, y las subunidades se intercambian.
- Los receptores NMDA cambian de composición de subunidades, y con ello cambia lo fácil que aprenden las neuronas.
- Muchos receptores se unen a varios ligandos; el GABA es el freno del cerebro y sus bolsillos laterales lo modulan.
- Barbitúricos y benzodiacepinas tienen su propio sitio en el receptor de GABA; la progesterona, un tercero.
- La misma hormona, el mismo receptor y el mismo promotor atrofian las neuronas del hipocampo y hacen crecer la amígdala.
- La sinapsis axo-axónica enseña la regla general: el efecto aparece si y solo si otra neurona está hablando.
- Cierre: modulación por ambiente, por hormonas y por genes, y de ahí que cada individuo sea distinto.
No basta con cuánto se grita
La neurobiología y la endocrinología comparten esqueleto, y el dogma de introducción siempre trae añadidos. Durante décadas preguntaron solo cuánto: cuánto neurotransmisor en la sinapsis, cuánta hormona en la sangre. Con técnicas moleculares más finas se vio que eso es la mitad de la historia: cuánta señal liberas y cuánto te escucha el destinatario. Puedes emitir ondas potentísimas; sin receptor no hay mensaje. Y el número de receptores cambia: es la autorregulación.
El mismo mecanismo: la diabetes de tipo 2
Las células adiposas captan glucosa cuando la insulina se une a sus receptores; si están completamente llenas, los retiran y dejan de escuchar. El trabajo clásico que liga obesidad, estrés del retículo endoplásmico y resistencia a la insulina cubre una mitad de la historia; el artículo del que la clase lee un pasaje, la otra: las proteínas desplegadas bloquean el transporte de los receptores recién fabricados y el receptor se agota en la membrana. Da igual cuánta insulina circule: la glucosa daña las arterias.
El receptor: número, piezas y ligandos
Un receptor no es una pieza única: son complejos de cinco o seis proteínas, y sus subunidades se intercambian. En los receptores NMDA esa composición modula cuánto aprenden las neuronas. Y pasa con las hormonas: antes de deshacerse del receptor de insulina, la célula adiposa le cambia subunidades para hacerlo menos sensible. Y los receptores se unen a varias cosas a la vez: múltiples ligandos.
Subunidades distintas que forman un receptor, codificadas por 5-6 genes; la célula las intercambia según las circunstancias.
GABA y sus bolsillos
El GABA es el freno del cerebro, y su receptor lleva bolsillos donde se unen otras moléculas. Según la clase, los barbitúricos fueron la primera clase de fármacos que se identificó; lo documentado es lo contrario: en 1977 se descubrió el sitio de las benzodiacepinas, y el de los barbitúricos después. La sorpresa fue un tercer sitio, para la progesterona y sus neuroesteroides, ansiolítico. Y la pregunta metodológica: si esas moléculas tienen hueco, algo parecido debe de haber dentro; llevamos décadas buscándolo sin éxito.
La misma hormona, dos efectos contrarios
Los glucocorticoides del estrés atrofian las neuronas del hipocampo y, en cambio, hacen crecer las proyecciones de la amígdala, que aprende antes a tener miedo: misma hormona, mismo receptor y resultados inversos. La explicación de la clase —un cofactor presente en el hipocampo y ausente en la amígdala— sigue sin verificar; sí consta que los correceptores se expresan según la región del cerebro.
La sinapsis axo-axónica
La neurona A excita a la B, pero una tercera manda su proyección a la terminación axónica de A y libera allí GABA, que apaga el potencial de acción: el mensaje no llega. La lección: esa tercera neurona no tiene efecto por sí sola sobre la B; solo cuenta si y solo si A intenta hablar con B.
Lo mismo con hormonas: CRH y vasopresina
La CRH sale del hipotálamo y hace que la hipófisis libere ACTH; la vasopresina, sola, no haría nada en absoluto, pero cuando ya hay CRH alrededor multiplica la respuesta. El absoluto no se sostiene: la vasopresina es también secretagogo de ACTH, solo que más débil.
«Depende» también en los genes
La regla vale fuera de la sinapsis. La variante FADS2 no tiene efecto en quien no fue amamantado y sí en quien lo fue; la versión de riesgo de un gen de la agresividad solo cuenta con maltrato; y las dos X no dicen nada de las matemáticas hasta que se mira el país, porque en Islandia la brecha se invierte.
El cierre
Todo esto son jerarquías de cláusulas «si y solo si», la misma idea del curso desde las interacciones gen-ambiente. Y el pago final: la experiencia esculpe diferencias individuales.
Quiénes salen en este tema
La teoría de James-Lange
- William James — Médico y filósofo estadounidense (1842-1910), profesor en Harvard y figura fundadora de la psicología en su país. En 1884 propuso que la emoción que sentimos es la percepción de un cambio corporal que ocurre antes: primero el cuerpo y después el sentimiento. La clase lo trae aquí para explicar por qué una benzodiacepina que relaja el músculo calma también la ansiedad. Wikipedia
- Carl Georg Lange — Médico y fisiólogo danés (1834-1900), profesor en Copenhague. Llegó por su cuenta, un año más tarde, a la misma idea sobre el orden de emoción y cuerpo, y de ahí que la teoría lleve los dos apellidos. La clase la llama «bucle de retroalimentación negativa»: eso es glosa suya, porque la propuesta original trata del orden de los sucesos, no de un circuito. Wikipedia
Leer la clase entera, palabra por palabra
Transcripción automática del vídeo, sin corregir: solo la hemos limpiado de ruido del subtítulo, maquetado en párrafos y puesto los títulos que él mismo va anunciando. Los estudios y las citas se dejan en su inglés original y se pueden pulsar.
Traducción al castellano automática: si un matiz importa, comprueba el original inglés.
Repaso: el dogma, con variaciones
We resume now with our previous lecture, looking at advanced topics in neurobiology and endocrinology, with the themes being foundational stuff, exactly the same in the two systems. All the dogma you've learned already comes with elaborations. It is not always the case one hormone causes one hormone. It is not always the case one neurotransmitter coming out of axon terminals.
There's more complexity, multiple messengers, spatial control as to different branches of a neuron, as to what external branches will be having, how much of an action potential, different branches coming out of the hypothalamus. All of that. We move now to the next version, the next elaboration, which is, forever, as people began to learn about things like neurotransmitters and hormones, an incredibly dominating state of mind was to say, "Well, how much?
How much neurotransmitter is being released into the synapse? How much of some particular hormone is in the bloodstream? How much of a messenger is there?" And both fields were dominated by this reasonable notion that, like, you really need to know that to know how big of an effect you were going to have on a target neuron or a target cell in the body, how much of a messenger.
La segunda mitad de la ecuación: cuánto te escuchan
And what people began to realize only some decades ago with fancier molecular techniques is that's only half the story: how much of a signal are you releasing, and how much is the recipient of that signal listening?
And you have here this world where you could be broadcasting by radio — I mean, do people still broadcast with radio? — but incredibly powerful radio waves going out all over the place, and what a strong signal!
But if you happen not to have a radio, you have no ears, you do not receive the message. Ah, it is just as interesting to ask how much is a target neuron or cell in the body listening to a neurotransmitter message or a hormonal message as how much of a message is being released.
Autorregulación: receptores que suben y bajan
And what this introduced people to was the notion that receptors — neurotransmitter receptors, hormone receptors — could change their number. The number of them could change, what came to be called autoregulation, much like the autoreceptors from neurons the other day, negative feedback loops, in this case, autoregulation. How does autoregulation work?
We all know this: if somebody is constantly screaming at you, you stop listening to them, you downregulate your sensitivity to what these people, what this person, is yelling about. On the other hand, if it's important and somebody's whispering, you really get attuned to. You have up and down regulation in response to changing levels of signals to try to balance things out.
And in the neurotransmitter realm, you see examples of this. You have a neuron is releasing tons and tons of neurotransmitter at the presynaptic end, and in some circumstances, the postsynaptic neuron will downregulate its number of receptors, will decrease it somewhat, just to get a little more equilibrium in the system. Drop down the amount of neurotransmitter or hormone being released, and you will get a compensatory upregulation.
El caso de la depresión
Stuff like that changes. Where is that of interest in the neurobiological realm? We are going to see, when we get to depression, there is a really straightforward explanation about the neurochemistry of depression involving the neurotransmitter serotonin, and it's totally straightforward and explains everything, except it really does not explain a lot about what's going on because there's some key confusing things you then see that could only be explained by a god-awful complicated scenario we're going to look at, of postsynaptic neurons up and down regulating number of receptors.
La diabetes de tipo 2: el mismo mecanismo en el sistema endocrino
We will get to that. So, the amount of serotonin, the amount of serotonin receptors, equally important. At the endocrine end, you see an equivalent of this in a disease our great-great-great grandparents never had to think about: adult-onset diabetes, Type 2 diabetes, insulin-resistant diabetes. Insulin — you secrete it from your pancreas. Don't worry if you're not on top of this, this is just to give you a sense.
You secrete insulin from your pancreas when food hits the bloodstream, and what insulin does is, among other things, it tells your fat cells to take up glucose. Great. Your fat cells have insulin receptors, and insulin binds to it, and as a result, glucose transporters activate and pull stuff into your fat cells. Suppose instead you are very, very overweight.
Suppose your fat cells are completely full, they are jam-packed with every bit of energy they can store. And the fat cell, in a sense, says, "Screw this, we have no room for any more glucose. We're not taking up any more. We are not going to listen to insulin anymore." We are going to remove our insulin receptors.
Cómo se pierden los receptores de insulina
Insulin receptors are made by ribosomes that are attached to the membrane of the endoplasmic reticulum, or ER. Newly made insulin receptors fold and dimerize in the ER. Cells also continuously remove and degrade insulin receptors at the cell surface. Healthy cells maintain a constant number of insulin receptors at their surface by balancing their addition and removal.
In obesity, accumulation of unfolded proteins in the ER causes ER stress. We found that ER stress inhibits the processing of insulin receptors in the ER. Transport of insulin receptors from the ER to the cell surface stops, but degradation continues. This balance of production and removal depletes the receptor at the cell surface, so the response of cells to insulin diminishes.
And at that point, you have insulin-resistant diabetes. You have fat cells that don't listen to insulin. Oh my God, does that get you into trouble? Because the fat cells can't take up energy anymore, you're going to starve?
No, they're like doing that because they're completely full, they're chock-full of all of that. So what's the downside of that? All that glucose in your bloodstream doesn't get taken up into target cells, and instead it circulates around and around and around. It gets into trouble because it tends to clog up arteries, things of that sort.
So, insulin-resistant diabetes: at that point, you could be secreting so much insulin it's dripping out of your nose, but if at the target end of things, the fat cells, if they have downregulated their insulin receptors out of existence, it doesn't matter how much you're screaming with insulin. So, changing the number of receptors, the second half of the equation: how loudly you yell, how well you're being listened to.
El receptor no es un monolito
Another domain where you see this is receptors. Your average receptor is incredibly complicated. It's got different domains, different proteins, and it's coupled to an ion channel if it is a neurotransmitter receptor. If it is a steroid hormone receptor, it's got the hormone binding domain and the DNA binding domain. All of these are big complicated molecules.
The term in the business is, they are made of protein complexes. There's five or six different proteins that combine to form this receptor, and five, six different proteins, five, six different genes. And you can get switching, subunit switching, where you'll take out this version of this receptor protein and replace it with this other version, which makes it a little bit more excitable or a little bit less so, or who knows what.
You've got subunit switching there, which can happen in all sorts of circumstances. And there's a whole class of receptors for neurotransmitters in the brain, NMDA receptors, where depending on the composition, the subunit composition of these NMDA receptors, that influences how readily neurons learn new stuff. It modulates learning and memory. Okay. So, another way of things being more complicated: the receptor is not the monolithic thing we just saw.
Its numbers can change, it could increase, decrease, and its composition can be altered to change the flavor of its excitability. And you see the same thing in endocrine systems. Back to our example before, those fat cells are like totally fed up with trying to take up more glucose because they have no more room, and they say, "Forget it, we're going to take away our insulin receptors." Before they do that, the first thing they do is they switch around some of the subunit features of the insulin receptor to make it less responsive to insulin.
Same deal, change a little bit of the makeup of the receptor. But if that doesn't solve the problem, and you're still being inundated with glucose in the bloodstream, and you're still full, then you say, "Forget it, that's not enough, we're going to get rid of the receptor entirely." But the point there being, you change the number of receptors, increase or decrease them.
You change the subunit compositions of them in different circumstances to make them a little more this, a little bit less that. And we can see all sorts of gradualist evolutionary change going on there in the genes coding for these subunits. Okay. So that's important. Next domain. Next domain, more complicated than the dogma one gets in the introductions, which is this notion that, "Here's the receptor for whatever, and it binds whatever, and that's the entire world of that receptor.
Un receptor, varios ligandos
It's the whatever-binding receptor, and that's all you need to know." But then, following our similar themes here of multiplicity, you get all sorts of cases where receptors bind multiple things. Jargon in the field: multiple ligands. Do not panic at that word, not relevant, but where receptors bind multiple different things with interesting consequences.
GABA: el freno del cerebro
Example from the nervous system: neurotransmitter GABA. GABA, if you only need to remember one thing about GABA, if you're new to this business: GABA is inhibitory. It's the most inhibitory neurotransmitter in the brain. It is ubiquitous, it's all over the place. That diagram the other day of those feedback loops between the prefrontal cortex and the nucleus accumbens and the ventral tegmentum, and all the little feedback loops that make us capable of being made happy by both symphonies and back rubs or something.
All of that feed — all that feedback, especially, is with little GABA-releasing neurons that are inhibitory, just fine-tuning the various loops. So, GABA is an inhibitory neurotransmitter. Do not freak out at this phrase, but what it mediates is hyperpolarization of the neuron, making it less excitable. So, we've got our GABA receptor here, and then along comes GABA from the presynaptic neuron, which, suddenly, up and down instead of left and right, GABA comes in here and it makes this neuron less excitable, less likely to have an action potential.
Bolsillos laterales: los barbitúricos
So people had a fine time figuring out the molecular structure of the GABA receptor and all its different subunits. And then people began to notice that there were little side pockets on the receptors that bound other stuff. The first class that was identified were barbiturates. Barbiturates, what are they?
They tranquilize you so radically that you become unconscious. Barbiturates, and as used for surgical anesthesia, what they do is they make the receptor much more responsive to GABA. So, this inhibitory GABA signal, when there's barbiturates around, are so inhibitory that you're unconscious before you know it. So, modulation at this major tranquilizer barbiturate binding site.
Las benzodiacepinas: el tranquilizante menor
What that suggests is, from that term, that there's a minor tranquilizing binding site also. And we've heard about these. These are the benzodiazepines. The benzodiazepines, the muscle relaxants if you've got a muscle spasm, the relaxing your psyche if you've got anxiety. Benzodiazepines like Valium, Librium. The way they work to reduce anxiety, to reduce muscle tone, we heard the other day in terms of that James-Lange negative feedback loop: "Whoa, I still feel totally anxious, but wow, my muscles are so loose, I must not be feeling that anxious after all." That feedback business due to benzodiazepines.
And they've got their own binding site on the GABA receptor. It is not as potent of an interaction as with barbiturates, thus, minor tranquilizers, major tranquilizers. So, that was totally cool, people figuring out, "Wow, these two very important classes of drugs!" There was a time that benzodiazepines like Valium were the most prescribed drugs in the United States, and this was a major advance.
Un tercer sitio de unión: la progesterona
Oh, okay, so benzodiazepines are making the GABA receptor more sensitive to GABA, and thus more hyperpolarizing, more inhibitory. And then people got their biggest surprise: they found a third binding site on the GABA receptor for the hormone progesterone. Okay, you should have all sorts of like bells going off in your heads at this point.
Bell number one: wait, this is a hormone? We're talking about neurochemistry, neurotransmitters here. A hormone having an effect on a neurotransmitter receptor system? Yeah. Progesterone is a steroid hormone. We already learned what it does is it binds progesterone and then goes to a promoter, it's doing stuff at the genes. What's it doing having its own little binding site on GABA for progesterone?
And progesterone-like hormones, some of which are now known as neurosteroids, what they do is progesterone has a small amplifying effect on GABA, just like benzodiazepines. Progesterone, progesterone, what? It's progestational, it's a hormone that has to do with pregnancy and all of that. Progesterone levels soar during pregnancy, and there is good reason to think that it has some strongly anti-anxiety effects by way of this pathway.
And you better bet we will be getting soon to the whole business about mood changes, affect, negative affect around the time of one's period in a substantial subset of women, or in the aftermath of giving birth in the form of increased risk of a postpartum depression. What you see there, those are circumstances where progesterone levels are crashing way fast, and there's reasons to think that GABA is a little bit less effective as a result, and things like anxiety, depression risk become more prevalent there.
So, main thing there is, look at this. What is this? This gene coding — genes coding for this complex of subunits. It's all about responding to GABA, being modulated by these drugs: anesthetics, anti-anxiety drugs, progesterone, with a bunch of behavioral effects we'll be learning about. So that's plenty interesting. How about multiple binding sites at the hormone end?
El puzle: la misma hormona, dos efectos contrarios
We just looked at a hormone interaction. Back to glucocorticoids, my beloved stress hormones, bind to the glucocorticoid receptor. And what we saw was that that exposes a DNA binding domain which binds to a promoter and you turn on various genes. And there was a puzzle, a puzzle that emerged a while back, that a number of labs, including mine, tried to sort out, which was, "Okay, stress glucocorticoids, what do they do in the hippocampus?
They screw up learning and memory. Glucocorticoids during major stress, they cause hippocampal neurons to atrophy and synapses to become less excitable. And that's when you're under stress, learning is not ideal for you." So that's terrific. But then, meanwhile, right next door in the amygdala — you know, right next door, just the amygdalofugal pathway — right next door in the amygdala, what does stress and lots of glucocorticoids do?
It makes amygdala better at learning stuff, better at learning to be afraid of things. Amygdaloid neurons grow new projections during stress, they get more excitable, the amygdala gets bigger while the hippocampus actually shrinks in some realms that we'll hear about. And what's the result?
This is an amygdala that learns to be afraid of things that other people are not. This is the neurochemistry of why stress increases the risk of anxiety. So that's totally cool, all of that. But wait a second, the same hormone binding to the same receptor, which interacts with the same promoter in the DNA, and in the hippocampus it causes neurons to shrivel, and in the amygdala it causes neurons to grow new projections.
El cofactor del receptor
How could this be? This was utterly confusing to all of us until it was figured out: "Oh, there's a minor binding site for what is now termed a co-factor, a hormone receptor co-factor." And this one is present in the hippocampus, but not in the amygdala. And when this one is binding in here, X does whatever to the genome, and when this isn't here, X does exactly the opposite.
So you're getting magnified ability to sort of regulate this whole system as a result of this co-factor stuff. So, that's a whole additional world of hormones, and that explains things like why stress and glucocorticoids decrease inflammation in some parts of the brain and body while increasing inflammation in other parts, something turning out to be very relevant to the inflammation in long COVID that goes on.
«Depende»: la modulación como norma
So, what does this neurotransmitter do? Well, it's modulated by all these other bind. What does this hormone do? Well, it depends on whether this thing is around or not. Some more complicated binding stuff there. Now, what this should begin to sound like to you is one of our themes from previous lectures. Well, what's the effect of glucocorticoids on expression of a gene having to do with neurons growing or atrophy?
And the answer is, "It depends, it depends, it depends." Are we in the hippocampus or the amygdala? It depends. Is this thing present or not? How inhibitory is GABA as a neurotransmitter? It depends. Are there benzodiazepines around?
Are there barbiturates on board? What about progesterone levels? Conditional clauses, modulatory ones, straight out of our gene-environment interactions. If you are not able to say, "Ooh, what do glucocorticoids do to dendritic whatevers?" if your answer has to be, "It depends, it depends, are we in the hippocampus or the amygdala?" We are looking at an interaction just like gene-environment interaction.
El circuito de tres neuronas y la sinapsis axo-axónica
This one is a hormone by brain location interaction, or a hormone by steroid receptor co-factor interaction. We know this concept, and these are more examples of the same. Here's a great example of it. So we've got neuron A, and what it does is it excites neuron B by C, releasing its neurotransmitter, which is blue, and binding to the blue receptor, and that's all great.
And we see, as part of this circuit, there's neuron C. Neuron C is doing totally nutty, crazy things. When you have been trained in like Neuro 101, the first bizarre thing about it is, it's not sending its projections to the dendrites on another neuron, it's sending its projection to the axon terminal of this neuron.
How weird is that? What, it's going to release neurotransmitter there? Like, there's going to be like receptors on the axon terminal for some other neurotransmitter? Yeah, that's the next bizarre thing. There's receptors here for the neurotransmitter coming out of here. We've already seen dogma violated the other day: presynaptic autoreceptors sitting there that could measure the amount of neurotransmitter being pumped.
But now we're seeing on axons, axon terminals, receptors for some completely different neurotransmitter system. This is as crazy as the other day, postsynaptic neurons making and releasing neurotransmitters that go backwards, retrograde signaling. So here we've got this weird thing, and what we have is what is called an axo-axonic synapse. So this has just broken all of our rules.
To begin to get more of a sense as to what's going on here: neuron C releases GABA. This is a classic local, little inhibitory neuron. What happens when GABA comes out and binds to its receptor?
Modulated by this, it binds to there. It silences it, hyperpolarizes it, makes less excitable this little stretch of membrane. What are the consequences of that? So this neuron is having an action potential, and it's shooting down, and it shoots down here just fine and releases its neurotransmitters here. But because this GABAergic neuron has hyperpolarized this little stretch, it kills the action potential, it snuffs it out.
And thus, this neuron's action potential is unable to propagate and cause the release of neurotransmitters. So we have GABA blocking the excitation of B by A. So we can ask the same sort of question as before, which is, "Oh, now looking at this, what are the effects of GABA on neuron B?" And what we know is, all on its own, GABA, neuron C, has no effect on neuron B.
It has no direct effect at all. It influences this universe if and only if A is trying to talk to B. It does not play a causative role, it is modulating the means by which A talks to B. And it's our same exact deal again, which is, "Well, so what are the effects of neuron C on neuron B?" And the answer is, "It depends.
It depends." If and only if A is trying to talk to B, then neuron C is really disrupting stuff. In the absence of it, it doesn't matter. Similarly, so now in the endocrine version of it, we've got that hormone CRH, CRH, which we saw comes out of the hypothalamus during stress and goes to the pituitary and releases ACTH.
CRH y vasopresina: el mismo patrón en hormonas
Why such a bizarre system? Is that of a whole separate hormone system with a whole little separate, little circulatory system? Once again, evolution, isn't it essentially efficient? It comes up, but improvises with stuff. But we had that system from the other day, CRH released during stress and then causing the pituitary to do its thing through those corticotrophs.
And what we see here is if you add in that other hypothalamic hormone that's relevant, vasopressin, and add in vasopressin... Put vasopressin by itself, it has no effect at all on ACTH release. But if you add in vasopressin when there's already CRH around it, it greatly potentiates the effects of CRH. Well, what are the effects of vasopressin on ACTH release from the pituitary?
And the answer is, "It depends. It depends." On its own, it does nothing, but if there is CRH around it, it will greatly potentiate the response. Modulatory. And what we should be able to do by now, what you should be able to do effortlessly at this point, is let's not even erase this diagram.
«Depende» también en los genes
We can say, "Well, what are the effects of this particular gene on growth of this plant? What are the effects of this gene?" And the answer is, "It depends." Are we talking about this much rainfall in the Sahara or this much rainfall in the Congo?
A gene-environment interaction. We ask another one, "Whoa, so what are the effects of having this gene FADS2 on IQ?" As we saw the other day, the answer is, "It depends." It has no effect at all in individuals who were not breastfed, but if you were, it has a boosting effect. This is our modulatory theme over and over.
"What's the effect of having this bad news version of a gene involved in aggression?" We will hear much about. And the answer is, "It has no effect at all in a normal childhood, and only when it is coupled with childhood abuse." This is our thing. "What's the effect of having two X chromosomes on your math skills?" And the answer is, "It depends." What sort of culture are you living in?
If you are treated in a crappy, repressive way because you are a female, it's going to have like, math scores are going to be very different than if you're basking in the Icelandic sun's equality. And all of it. Our theme over and over and over, whether gene-environment interactions, whether hormone-neurotransmitter interactions, whether circuitry, whether all of these things, is over and over this theme of modulation.
Modulación: el cierre
Modulation. "What's the effect of this on that?" "It depends." In what environment, in what hormonal background, and what genetic background? Modulation. Our theme endlessly. So, notice now we've got a double version of this hierarchically. "Well, what are the effects of GABA on this neuron?" And we've just seen that, well, it depends. It depends on if this neuron is trying to talk to this neuron, and if this neuron is trying to talk.
C indirectly affects B. "How much does GABA coming out of C affect the neuron under this circumstance?" And it depends, it depends. Are there barbiturates? How much progesterone? How much benzodiazepines? All of that. Conditional clauses, modulatory, "if-then," "if and only if" these are around, GABA has a maximal effect there. If and only if that's happening in this synapse.
If and only if this neuron is sending an action potential, then it has consequences here. Hierarchies of our "if-then" clauses. By the way, you should be asking a question that comes to mind every time you're looking at how some drug does something to something in the brain, some neurotransmitter, whatever, and you'll say, "Well, the GABA receptor did not evolve in order to respond to somebody taking barbiturates or Valium." Or, what it tells in all those cases is, lurking around in your brain is some endogenous barbiturate that binds there, and that's what it evolved for.
There's some sort of endogenous benzodiazepine, and people have literally been looking for that for 40 years without much success. When you see a drug doing something or other, even a drug working here, this did not evolve for responding to that, a drug. It tells you, something or other inside the brain there resembles that drug, and go look for it.
Okay. So, we've had our big overview here as to all the ways the nervous system is not as simple as the dogma of introductory stuff. Likewise, the endocrine system: all sorts of ways in which there's more control, more regulation, more feedback regulation, more multiplicity of signaling, with combinations, permutations, that can have the same message here but be doing very different things at this end, and thus getting specificity out of that.
That being one big theme. Another big theme being modulation, over and over, whether within this lecture we are seeing a neurotransmitter, a part of the brain, a hormone, which is doing something if and only if it is coupled with something else: modulation, interaction, the same thing out of all of our gene and behavior stuff.
This is a theme not just for the lecture, but for the entire course, you should be noting by now. The final key thing that comes out of all of this is, look at the vast playground of possibilities here, by which experience will change things, will change how much of this negative feedback loop is activated, and how much of this is made, and what alternative splicing of this or that, all the stuff we know already in terms of how dramatically things can change.
And what is implicit in that is, over and over and over, helping to explain how you became you, and why you are a very different proposition than whoever is sitting next to you: individual differences sculpted by one's biological and environmental past.
Repaso: el dogma, con variaciones
Retomamos ahora la clase anterior, con los temas avanzados de neurobiología y endocrinología, y los temas de fondo son los fundamentales, exactamente los mismos en los dos sistemas. Todo el dogma que ya habéis aprendido viene con añadidos. No siempre es el caso que una hormona provoque una hormona. No siempre es el caso que salga un neurotransmisor de las terminaciones axónicas.
Hay más complejidad: varios mensajeros, control espacial según las distintas ramas de una neurona, según lo que tengan las ramas externas, cuánto de un potencial de acción, distintas ramas que salen del hipotálamo. Todo eso. Pasamos ahora a la siguiente versión, al siguiente añadido, que es este —y lo es desde siempre, desde que la gente empezó a aprender sobre cosas como los neurotransmisores y las hormonas—: una mentalidad increíblemente dominante consistía en decir: «Bueno, ¿cuánto?
¿Cuánto neurotransmisor se está liberando en la sinapsis? ¿Cuánta cantidad de una hormona concreta hay en el torrente sanguíneo? ¿Cuánto mensajero hay?» Y los dos campos estaban dominados por esa noción razonable de que, en fin, de verdad necesitas saber eso para saber qué tamaño tendrá el efecto sobre una neurona diana o una célula diana del cuerpo: cuánto mensajero.
La segunda mitad de la ecuación: cuánto te escuchan
Y lo que la gente empezó a comprender hace solo unas décadas, con técnicas moleculares más finas, es que eso es solo la mitad de la historia: cuánta señal estás liberando y cuánto te está escuchando el destinatario de esa señal.
Y tienes aquí este mundo en el que podrías estar emitiendo por radio —quiero decir, ¿todavía se emite por radio?—, pero ondas de radio increíblemente potentes saliendo por todas partes, ¡y qué señal tan fuerte!
Pero si resulta que no tienes radio, no tienes oídos, no recibes el mensaje. Ah, es igual de interesante preguntar cuánto está escuchando una neurona o una célula diana del cuerpo un mensaje de neurotransmisor o un mensaje hormonal, que cuánto mensaje se está liberando.
Autorregulación: receptores que suben y bajan
Y lo que esto introdujo fue la noción de que los receptores —los receptores de neurotransmisores, los receptores de hormonas— podían cambiar de número. Su número podía cambiar, lo que llegó a llamarse autorregulación, muy parecido a los autorreceptores de las neuronas del otro día, bucles de retroalimentación negativa, en este caso autorregulación. ¿Cómo funciona la autorregulación?
Todos lo sabemos: si alguien te está gritando constantemente, dejas de escucharle, regulas a la baja tu sensibilidad a lo que esa gente, a lo que esa persona, te está chillando. En cambio, si es importante y alguien susurra, te pones muy atento. Tienes regulación al alza y a la baja en respuesta a niveles cambiantes de señal, para intentar equilibrar las cosas.
Y en el terreno de los neurotransmisores ves ejemplos de esto. Tienes una neurona que libera montones y montones de neurotransmisor en el extremo presináptico y, en algunas circunstancias, la neurona postsináptica regulará a la baja su número de receptores, lo reducirá un poco, solo para lograr algo más de equilibrio en el sistema. Reduce la cantidad de neurotransmisor o de hormona que se libera y tendrás una regulación al alza compensatoria.
El caso de la depresión
Cosas así cambian. ¿Dónde interesa eso en el terreno neurobiológico? Ya veremos, cuando lleguemos a la depresión, que hay una explicación muy directa de la neuroquímica de la depresión en la que interviene el neurotransmisor serotonina, y es totalmente directa y lo explica todo, salvo que en realidad no explica gran parte de lo que pasa, porque luego ves algunas cosas confusas y clave que solo podrían explicarse con un escenario espantosamente complicado que vamos a mirar: neuronas postsinápticas regulando al alza y a la baja su número de receptores.
La diabetes de tipo 2: el mismo mecanismo en el sistema endocrino
Ya llegaremos a eso. Así que la cantidad de serotonina y la cantidad de receptores de serotonina importan por igual. En el lado endocrino ves el equivalente de esto en una enfermedad en la que nuestros tatarabuelos nunca tuvieron que pensar: la diabetes de inicio en la edad adulta, la diabetes de tipo 2, la diabetes resistente a la insulina. La insulina: la segregas desde el páncreas. No os preocupéis si no domináis esto, es solo para que os hagáis una idea.
Segregas insulina desde el páncreas cuando la comida llega al torrente sanguíneo, y lo que hace la insulina es, entre otras cosas, decirle a tus células adiposas que capten glucosa. Estupendo. Tus células adiposas tienen receptores de insulina, la insulina se une a ellos y, como resultado, se activan los transportadores de glucosa y meten cosas dentro de tus células adiposas. Supón en cambio que tienes mucho, mucho sobrepeso.
Supón que tus células adiposas están completamente llenas, atiborradas de toda la energía que pueden almacenar. Y la célula adiposa, en cierto sentido, dice: «A la porra, no tenemos sitio para más glucosa. No captamos nada más. Ya no vamos a escuchar a la insulina.» Vamos a retirar nuestros receptores de insulina.
Cómo se pierden los receptores de insulina
En la obesidad, la acumulación de proteínas desplegadas en el RE provoca estrés del RE. Encontramos que el estrés del RE inhibe el procesamiento de los receptores de insulina en el RE. El transporte de receptores de insulina desde el RE hasta la superficie celular se detiene, pero la degradación continúa. Ese equilibrio entre producción y retirada agota el receptor en la superficie celular, así que la respuesta de las células a la insulina disminuye.
Y en ese punto tienes diabetes resistente a la insulina. Tienes células adiposas que no escuchan a la insulina. Ay, Dios mío, ¿y eso no te mete en un buen lío? Como las células adiposas ya no pueden captar energía, ¿te vas a morir de hambre?
No, hacen eso precisamente porque están completamente llenas, rebosantes de todo eso. Entonces, ¿cuál es el lado malo? Que toda esa glucosa de tu torrente sanguíneo no la captan las células diana y, en vez de eso, circula y circula y circula. Y se mete en líos porque tiende a obstruir las arterias, cosas de ese tipo.
Así que, diabetes resistente a la insulina: en ese punto podrías estar segregando tanta insulina que se te saliera por la nariz, pero si en el extremo diana, en las células adiposas, han regulado a la baja sus receptores de insulina hasta hacerlos desaparecer, da igual cuánto grites con insulina. Así que, cambiar el número de receptores: la segunda mitad de la ecuación. Cuánto gritas y qué bien te escuchan.
El receptor no es un monolito
Otro terreno donde ves esto son los receptores. Tu receptor medio es increíblemente complicado. Tiene dominios distintos, proteínas distintas, y está acoplado a un canal iónico si es un receptor de neurotransmisor. Si es un receptor de hormona esteroidea, tiene el dominio de unión a la hormona y el dominio de unión al ADN. Todas ellas son moléculas grandes y complicadas.
El término del oficio es que están hechos de complejos proteicos. Hay cinco o seis proteínas distintas que se combinan para formar este receptor, y cinco, seis proteínas distintas, cinco, seis genes distintos. Y puedes tener intercambio, intercambio de subunidades, en el que quitas esta versión de esta proteína del receptor y la sustituyes por esta otra versión, lo que lo hace un poco más excitable o un poco menos, o quién sabe qué.
Ahí tienes el intercambio de subunidades, que puede ocurrir en toda clase de circunstancias. Y hay toda una clase de receptores de neurotransmisores en el cerebro, los receptores NMDA, en los que, según la composición, según la composición de subunidades de estos receptores NMDA, eso influye en la facilidad con que las neuronas aprenden cosas nuevas. Modula el aprendizaje y la memoria. Vale. Así que otra forma de que las cosas sean más complicadas: el receptor no es esa cosa monolítica que acabamos de ver.
Su número puede cambiar, puede aumentar o disminuir, y su composición puede alterarse para cambiar el sabor de su excitabilidad. Y ves lo mismo en los sistemas endocrinos. Volviendo a nuestro ejemplo anterior: esas células adiposas están hartas de intentar captar más glucosa porque ya no les cabe, y dicen: «Déjalo, vamos a quitarnos los receptores de insulina.» Antes de hacerlo, lo primero que hacen es cambiar algunos rasgos de las subunidades del receptor de insulina para hacerlo menos sensible a la insulina.
Lo mismo: cambia un poco la composición del receptor. Pero si eso no resuelve el problema, y sigues inundada de glucosa en el torrente sanguíneo, y sigues llena, entonces dices: «Déjalo, eso no basta, vamos a deshacernos del receptor por completo.» Pero la idea era esa: cambias el número de receptores, los aumentas o los disminuyes.
Cambias la composición de subunidades según las circunstancias para hacerlos un poco más de esto y un poco menos de aquello. Y podemos ver toda clase de cambio evolutivo gradualista ocurriendo ahí, en los genes que codifican estas subunidades. Vale. Así que eso es importante. El siguiente terreno. El siguiente terreno es más complicado que el dogma que uno recibe en las introducciones, que es esta noción de que «aquí está el receptor de lo que sea, y se une a lo que sea, y ese es todo el mundo de ese receptor».
Un receptor, varios ligandos
»Es el receptor de unión a lo que sea, y eso es todo lo que necesitas saber.» Pero entonces, siguiendo estos mismos temas nuestros de la multiplicidad, tienes toda clase de casos en que los receptores se unen a varias cosas. La jerga del campo: múltiples ligandos. No os asustéis con esa palabra, no es relevante, pero son casos en que los receptores se unen a varias cosas distintas con consecuencias interesantes.
GABA: el freno del cerebro
Ejemplo del sistema nervioso: el neurotransmisor GABA. Del GABA, si solo tienes que recordar una cosa, si eres nuevo en este negocio: el GABA es inhibidor. Es el neurotransmisor más inhibidor del cerebro. Es ubicuo, está por todas partes. Ese diagrama del otro día, el de los bucles de retroalimentación entre la corteza prefrontal y el núcleo accumbens y el tegmento ventral, y todos los bucles pequeños de retroalimentación que hacen que seamos capaces de que nos hagan felices tanto las sinfonías como los masajes de espalda, o algo así.
Toda esa retro — toda esa retroalimentación, sobre todo, va con neuronitas que liberan GABA y son inhibidoras, solo afinando los distintos bucles. Así que el GABA es un neurotransmisor inhibidor. No os asustéis con esta frase, pero lo que media es la hiperpolarización de la neurona, lo que la hace menos excitable. Así que tenemos aquí nuestro receptor de GABA y entonces llega el GABA desde la neurona presináptica, que, de pronto, arriba y abajo en lugar de izquierda y derecha, el GABA entra aquí y hace que esta neurona sea menos excitable, menos probable que tenga un potencial de acción.
Bolsillos laterales: los barbitúricos
Así que la gente se lo pasó muy bien descifrando la estructura molecular del receptor de GABA y todas sus subunidades distintas. Y luego la gente empezó a fijarse en que había pequeños bolsillos laterales en los receptores que se unían a otras cosas. La primera clase que se identificó fueron los barbitúricos. Los barbitúricos, ¿qué son?
Te tranquilizan tan radicalmente que pierdes la conciencia. Los barbitúricos, tal como se usan para la anestesia quirúrgica, lo que hacen es volver el receptor mucho más sensible al GABA. Así que esta señal inhibidora del GABA, cuando hay barbitúricos cerca, es tan inhibidora que pierdes la conciencia antes de darte cuenta. Así que modulación en este sitio de unión al barbitúrico, el tranquilizante mayor.
Las benzodiacepinas: el tranquilizante menor
Lo que eso sugiere es, a partir de ese término, que también hay un sitio de unión tranquilizante menor. Y de estos ya hemos oído hablar. Estas son las benzodiacepinas. Las benzodiacepinas: los relajantes musculares si tienes un espasmo muscular, la relajación de tu psique si tienes ansiedad. Benzodiacepinas como el Valium, el Librium. La forma en que funcionan para reducir la ansiedad, para reducir el tono muscular, la oímos el otro día en términos de ese bucle de retroalimentación negativa de James-Lange: «Uf, sigo sintiéndome totalmente ansioso, pero vaya, mis músculos están tan sueltos que no debo de estar tan ansioso después de todo.» Ese asunto de la retroalimentación por las benzodiacepinas.
Y tienen su propio sitio de unión en el receptor de GABA. No es una interacción tan potente como la de los barbitúricos; de ahí lo de tranquilizantes menores y tranquilizantes mayores. Así que eso fue totalmente alucinante, la gente descifrando: «¡Vaya, estas dos clases de fármacos tan importantes!» Hubo un tiempo en que las benzodiacepinas como el Valium eran los fármacos más recetados en Estados Unidos, y esto fue un avance importante.
Un tercer sitio de unión: la progesterona
Ah, vale, así que las benzodiacepinas hacen que el receptor de GABA sea más sensible al GABA y, por tanto, más hiperpolarizante, más inhibidor. Y entonces la gente se llevó su mayor sorpresa: encontraron un tercer sitio de unión en el receptor de GABA para la hormona progesterona. Vale, a estas alturas deberíais tener toda clase de campanas sonando en la cabeza.
Campana número uno: espera, ¿esto es una hormona? Aquí estamos hablando de neuroquímica, de neurotransmisores. ¿Una hormona teniendo un efecto sobre un sistema de receptores de neurotransmisores? Sí. La progesterona es una hormona esteroidea. Ya aprendimos que lo que hace es unirse a la progesterona y luego ir a un promotor; está haciendo cosas en los genes. ¿Qué pinta teniendo su propio sitito de unión en el GABA para la progesterona?
Y las hormonas similares a la progesterona, algunas de las cuales se conocen hoy como neuroesteroides, lo que hacen es que la progesterona tiene un pequeño efecto amplificador sobre el GABA, igual que las benzodiacepinas. Progesterona, progesterona, ¿qué? Es progestacional, es una hormona que tiene que ver con el embarazo y todo eso. Los niveles de progesterona se disparan durante el embarazo, y hay buenas razones para pensar que tiene algunos efectos fuertemente ansiolíticos por esta vía.
Y más os vale apostar que llegaremos pronto a todo el asunto de los cambios de humor, del afecto, del afecto negativo en torno a la regla en un subgrupo sustancial de mujeres, o en el posparto en forma de mayor riesgo de depresión posparto. Lo que ves ahí son circunstancias en las que los niveles de progesterona se desploman muy rápido, y hay razones para pensar que el GABA es un poco menos eficaz como resultado, y que cosas como la ansiedad o el riesgo de depresión son más frecuentes ahí.
Así que lo principal ahí es: mira esto. ¿Qué es esto? Este gen que codifica — genes que codifican este complejo de subunidades. Todo va de responder al GABA, de ser modulado por estos fármacos: anestésicos, ansiolíticos, progesterona, con un montón de efectos conductuales que iremos aprendiendo. Así que eso es bastante interesante. ¿Y con los sitios de unión múltiples en el lado hormonal?
El puzle: la misma hormona, dos efectos contrarios
Acabamos de mirar una interacción hormonal. Volvemos a los glucocorticoides, mis adoradas hormonas del estrés, que se unen al receptor de glucocorticoides. Y lo que vimos es que eso expone un dominio de unión al ADN que se une a un promotor y enciendes varios genes. Y había un puzle, un puzle que surgió hace tiempo y que varios laboratorios, incluido el mío, intentamos resolver, que era: «Vale, glucocorticoides del estrés, ¿qué hacen en el hipocampo?
Lo estropean todo con el aprendizaje y la memoria. Los glucocorticoides durante un estrés intenso hacen que las neuronas del hipocampo se atrofien y que las sinapsis se vuelvan menos excitables. Y eso es cuando estás bajo estrés: el aprendizaje no te va bien.» Así que eso es magnífico. Pero entonces, mientras tanto, justo al lado, en la amígdala —ya sabes, justo al lado, por la vía amigdalófuga—, justo al lado, en la amígdala, ¿qué hacen el estrés y muchos glucocorticoides?
Hacen que la amígdala sea mejor aprendiendo cosas, mejor aprendiendo a tener miedo de cosas. Las neuronas amigdalinas crían nuevas proyecciones durante el estrés, se vuelven más excitables, la amígdala se agranda mientras el hipocampo en realidad se encoge en algunos terrenos de los que oiremos hablar. ¿Y cuál es el resultado?
Esta es una amígdala que aprende a tener miedo de cosas de las que otras personas no tienen miedo. Esta es la neuroquímica de por qué el estrés aumenta el riesgo de ansiedad. Así que todo eso es totalmente alucinante. Pero espera un momento: la misma hormona uniéndose al mismo receptor, que interacciona con el mismo promotor del ADN, y en el hipocampo hace que las neuronas se encojan y en la amígdala hace que las neuronas críen nuevas proyecciones.
El cofactor del receptor
¿Cómo puede ser esto? Esto nos tenía totalmente desconcertados a todos hasta que se descifró: «Ah, hay un sitio de unión menor para lo que hoy se llama cofactor, un cofactor del receptor hormonal.» Y este está presente en el hipocampo, pero no en la amígdala. Y cuando este se une aquí, X hace lo que sea con el genoma, y cuando este no está, X hace exactamente lo contrario.
Así que obtienes una capacidad ampliada de regular todo este sistema gracias a este asunto del cofactor. Así que ese es todo un mundo adicional de hormonas, y eso explica cosas como por qué el estrés y los glucocorticoides reducen la inflamación en algunas partes del cerebro y del cuerpo mientras la aumentan en otras, algo que resulta ser muy relevante para la inflamación que sigue habiendo en la COVID persistente.
«Depende»: la modulación como norma
Así que, ¿qué hace este neurotransmisor? Bueno, está modulado por todas estas otras uniones. ¿Qué hace esta hormona? Bueno, depende de si esta cosa está cerca o no. Ahí hay más asunto de uniones complicadas. Y ahora esto debería empezar a sonarte a uno de nuestros temas de clases anteriores. ¿Cuál es el efecto de los glucocorticoides sobre la expresión de un gen relacionado con que las neuronas crezcan o se atrofien?
Y la respuesta es: «Depende, depende, depende.» ¿Estamos en el hipocampo o en la amígdala? Depende. ¿Está presente esto o no? ¿Cuánto de inhibidor es el GABA como neurotransmisor? Depende. ¿Hay benzodiacepinas cerca?
¿Hay barbitúricos a bordo? ¿Y los niveles de progesterona? Cláusulas condicionales, moduladoras, sacadas directamente de nuestras interacciones gen-ambiente. Si no eres capaz de decir: «Ah, ¿qué hacen los glucocorticoides con las dendritas y no sé qué?», si tu respuesta tiene que ser: «Depende, depende, ¿estamos en el hipocampo o en la amígdala?», estamos ante una interacción igual que la interacción gen-ambiente.
El circuito de tres neuronas y la sinapsis axo-axónica
Esta es una interacción de hormona por localización cerebral, o una interacción de hormona por cofactor del receptor esteroideo. Conocemos este concepto, y estos son más ejemplos de lo mismo. Aquí tenemos un gran ejemplo. Tenemos la neurona A, y lo que hace es excitar a la neurona B por medio de C, liberando su neurotransmisor, que es azul, y uniéndose al receptor azul, y todo eso está muy bien.
Y vemos que, como parte de este circuito, está la neurona C. La neurona C está haciendo cosas totalmente chifladas y disparatadas. Cuando te han formado en cosas como Neuro 101, lo primero raro que tiene es que no manda sus proyecciones a las dendritas de otra neurona: manda su proyección a la terminación axónica de esta neurona.
¿A que es raro? ¿Qué, va a liberar neurotransmisor ahí? ¿O sea que va a haber receptores en la terminación axónica para algún otro neurotransmisor? Sí, eso es lo siguiente raro. Aquí hay receptores para el neurotransmisor que sale de aquí. Ya vimos el otro día que se violaba el dogma: autorreceptores presinápticos colocados ahí que podían medir la cantidad de neurotransmisor que se bombea.
Pero ahora estamos viendo en los axones, en las terminaciones axónicas, receptores de un sistema de neurotransmisores completamente distinto. Esto es tan loco como lo del otro día: neuronas postsinápticas fabricando y liberando neurotransmisores que van hacia atrás, señalización retrógrada. Así que aquí tenemos esta cosa rara, y lo que tenemos es lo que se llama una sinapsis axo-axónica. Así que esto acaba de romper todas nuestras reglas.
Para empezar a hacerse más idea de qué está pasando aquí: la neurona C libera GABA. Esta es una clásica neurona inhibidora local, pequeñita. ¿Qué pasa cuando el GABA sale y se une a su receptor?
Modulada por esto, se une ahí. La silencia, la hiperpolariza, hace menos excitable este trocito de membrana. ¿Cuáles son las consecuencias de eso? Esta neurona está teniendo un potencial de acción, y va bajando, y baja hasta aquí sin problema y libera sus neurotransmisores aquí. Pero como esta neurona GABAérgica ha hiperpolarizado este trocito, mata el potencial de acción, lo apaga.
Y así, el potencial de acción de esta neurona no puede propagarse y provocar la liberación de neurotransmisores. Así que tenemos al GABA bloqueando la excitación de B por A. Podemos hacernos la misma pregunta de antes, que es: «Ah, ahora, mirando esto, ¿cuáles son los efectos del GABA sobre la neurona B?» Y lo que sabemos es que, por sí solo, el GABA, la neurona C, no tiene ningún efecto sobre la neurona B.
No tiene ningún efecto directo en absoluto. Influye en este universo si y solo si A está intentando hablar con B. No tiene un papel causal: está modulando el medio por el que A le habla a B. Y es exactamente el mismo asunto otra vez, que es: «Bueno, ¿y cuáles son los efectos de la neurona C sobre la neurona B?» Y la respuesta es: «Depende.
Depende.» Si y solo si A está intentando hablar con B, entonces la neurona C está interfiriendo de verdad. En su ausencia, da igual. Igualmente, ahora en la versión endocrina, tenemos esa hormona, la CRH, la CRH, que vimos que sale del hipotálamo durante el estrés y va a la hipófisis y libera ACTH.
CRH y vasopresina: el mismo patrón en hormonas
¿Por qué un sistema tan raro? ¿El de todo un sistema hormonal aparte, con su pequeño sistema circulatorio propio y separadito? Una vez más, la evolución, ¿no es esencialmente eficiente? Se le ocurre, pero improvisa con lo que hay. Pero teníamos ese sistema del otro día: CRH liberada durante el estrés y luego haciendo que la hipófisis haga lo suyo a través de esos corticotropos.
Y lo que vemos aquí es que si añades esa otra hormona hipotalámica que es relevante, la vasopresina, y añades vasopresina... Puesta la vasopresina por sí sola, no tiene ningún efecto en absoluto sobre la liberación de ACTH. Pero si añades vasopresina cuando ya hay CRH alrededor, potencia enormemente los efectos de la CRH. Bueno, ¿cuáles son los efectos de la vasopresina sobre la liberación de ACTH desde la hipófisis?
Y la respuesta es: «Depende. Depende.» Por sí sola no hace nada, pero si hay CRH alrededor, potenciará enormemente la respuesta. Moduladora. Y lo que ya deberíamos ser capaces de hacer, lo que deberíais ser capaces de hacer sin esfuerzo a estas alturas, es —no borremos ni siquiera este diagrama—.
«Depende» también en los genes
Podemos decir: «Bueno, ¿cuáles son los efectos de este gen concreto sobre el crecimiento de esta planta? ¿Cuáles son los efectos de este gen?» Y la respuesta es: «Depende.» ¿Estamos hablando de esta cantidad de lluvia en el Sahara o de esta cantidad de lluvia en el Congo?
Una interacción gen-ambiente. Preguntamos otra: «Vaya, ¿y cuáles son los efectos de tener este gen FADS2 sobre el cociente intelectual?» Como vimos el otro día, la respuesta es: «Depende.» No tiene ningún efecto en absoluto en las personas que no fueron amamantadas, pero si lo fuiste, tiene un efecto potenciador. Este es nuestro tema modulador, una y otra vez.
«¿Cuál es el efecto de tener esta versión mala de un gen implicado en la agresividad?» De eso oiremos mucho. Y la respuesta es: «No tiene ningún efecto en absoluto en una infancia normal, y solo cuando va junto con maltrato infantil.» Esto es lo nuestro. «¿Cuál es el efecto de tener dos cromosomas X sobre tus habilidades matemáticas?» Y la respuesta es: «Depende.» ¿En qué clase de cultura vives?
Si te tratan de una forma miserable y represiva porque eres mujer, va a pasar que las notas de matemáticas van a ser muy distintas que si estás tomando el sol de la igualdad islandesa. Y todo eso. Nuestro tema, una y otra vez, ya sean interacciones gen-ambiente, ya sean interacciones hormona-neurotransmisor, ya sea circuitería, ya sea todo esto, es una y otra vez este tema de la modulación.
Modulación: el cierre
Modulación. «¿Cuál es el efecto de esto sobre aquello?» «Depende.» ¿En qué ambiente, en qué trasfondo hormonal y en qué trasfondo genético? Modulación. Nuestro tema sin fin. Así que fijaos en que ahora tenemos una versión doble de esto, de forma jerárquica. «Bueno, ¿cuáles son los efectos del GABA sobre esta neurona?» Y acabamos de ver que, bueno, depende. Depende de si esta neurona está intentando hablar con esta neurona, y de si esta neurona está intentando hablar.
C afecta indirectamente a B. «¿Cuánto afecta el GABA que sale de C a la neurona en esta circunstancia?» Y depende, depende. ¿Hay barbitúricos? ¿Cuánta progesterona? ¿Cuántas benzodiacepinas? Todo eso. Cláusulas condicionales, moduladoras, «si-entonces», «si y solo si» estas cosas andan cerca, el GABA tiene ahí un efecto máximo. Si y solo si está pasando eso en esta sinapsis.
Si y solo si esta neurona está enviando un potencial de acción, entonces tiene consecuencias aquí. Jerarquías de nuestras cláusulas «si-entonces». Por cierto, deberíais estaros haciendo una pregunta que se te ocurre cada vez que miras cómo algún fármaco le hace algo a algo en el cerebro, algún neurotransmisor, lo que sea, y dirás: «Bueno, el receptor de GABA no evolucionó para responder a que alguien tome barbitúricos o Valium.» O, lo que te dice en todos esos casos es que por ahí dentro de tu cerebro anda agazapado algún barbitúrico endógeno que se une ahí, y que para eso evolucionó.
Hay algún tipo de benzodiacepina endógena, y la gente lleva literalmente 40 años buscándola sin mucho éxito. Cuando ves que un fármaco hace tal o cual cosa, incluso un fármaco que funciona aquí, esto no evolucionó para responder a eso, a un fármaco. Te dice que algo, lo que sea, dentro del cerebro se parece a ese fármaco: ve a buscarlo.
Vale. Así que aquí hemos tenido nuestra gran panorámica sobre todas las formas en que el sistema nervioso no es tan simple como el dogma de las cosas introductorias. Igualmente, el sistema endocrino: toda clase de formas en que hay más control, más regulación, más regulación por retroalimentación, más multiplicidad de señalización, con combinaciones, permutaciones, que pueden mandar el mismo mensaje aquí pero estar haciendo cosas muy distintas en este extremo, y así sacar especificidad de eso.
Ese es un gran tema. Otro gran tema es la modulación, una y otra vez, ya veamos en esta clase un neurotransmisor, una parte del cerebro, una hormona, que está haciendo algo si y solo si va junto con otra cosa: modulación, interacción, lo mismo que salía de todo nuestro asunto de genes y conducta.
Este es un tema no solo de esta clase, sino de todo el curso, y a estas alturas deberíais estar tomando nota. Lo último y clave que sale de todo esto es: mira el vasto patio de juegos de posibilidades que hay aquí, por el cual la experiencia cambiará las cosas, cambiará cuánto se activa este bucle de retroalimentación negativa, y cuánto se fabrica de esto, y qué empalme alternativo de esto o aquello, todo lo que ya sabemos sobre cuán drásticamente pueden cambiar las cosas.
Y lo que está implícito en eso es que, una y otra y otra vez, ayuda a explicar cómo llegaste a ser tú, y por qué eres una propuesta muy distinta de quienquiera que esté sentado a tu lado: diferencias individuales esculpidas por el pasado biológico y ambiental de cada uno.
Fuentes · 15 entradas
De dónde sale cada dato de este tema
Las fuentes de estas 2 clases, cada clase en su caja. Está plegado para que no tape las clases; se abre cuando haga falta.
Neuroendocrinología · 15 fuentes
Clase 15 · Cuatro dogmas y sus grietas · 3 fuentes
- 15Vale, W., Spiess, J., Rivier, C., & Rivier, J. Characterization of a 41-residue ovine hypothalamic peptide that stimulates secretion of corticotropin and beta-endorphin. Science, vol. 213 (primera página 1394) 1981. enlaceUn péptido de 41 aminoácidos purificado de extractos de hipotálamo de oveja estimulaba la secreción de corticotropina y de beta-endorfina en cultivos de células de la hipófisis anterior: es la caracterización de la CRF, hoy CRH. La clase la fecha como «principios de los ochenta, cuando se resolvió por primera vez su estructura» y añade que aquel era el laboratorio donde él hacía el postdoc, sin nombrar ni al autor principal ni el centro. La autoría y el año están comprobados en el registro de Crossref y Semantic Scholar del DOI; el obituario del propio centro (Salk) atribuye a Vale y sus colegas ser los primeros en caracterizar el péptido. La otra afirmación que la clase hace en la misma frase, que había más de una clase de CR en el hipotálamo, NO sale de este artículo. La clase tampoco dice que este trabajo sea el de la retroalimentación sensible a la tasa: son dos estudios distintos.
- 15Dallman, M. F., & Yates, F. E. Dynamic asymmetries in the corticosteroid feedback path and distribution-metabolism-binding elements of the adrenocortical system. Annals of the New York Academy of Sciences 156(2): 696-721 1969. enlaceEl artículo describe «asimetrías dinámicas» en el sistema adrenocortical y llega a la existencia de propiedades sensibles a la tasa de subida dentro de la vía de retroalimentación negativa de los corticosteroides; se apoya en la idea de Clynes (1961) de una sensibilidad unidireccional a la tasa, es decir, un canal de retroalimentación que responde a la VELOCIDAD de subida de los glucocorticoides y no a su cantidad. Es exactamente el mecanismo que la clase atribuye a Mary Dallman. La etiqueta que la clase le pone —«era un artículo teórico, no un experimento»— es lo que se corrige en el defecto D1: el trabajo tiene su propia sección de métodos, con experimentos en rata (inyecciones e infusiones de corticosterona y medida de corticosterona plasmática por microfluorimetría), y arranca de los experimentos de retroalimentación de Sayers de los años cuarenta. El DOI es 10.1111/j.1749-6632.1969.tb14008.x; Yates y Dallman publicaron después una formalización matemática (IEEE Trans. Biomed. Eng. 1970).
- 15Porter, J. C., & Jones, J. C. (y después Porter y colaboradores) Porter's hypophysial-portal-blood work (the specific finding Sapolsky describes is not the one the classic papers report). Endocrinology 58(1): 62-67 (Porter y Jones 1956, «Effect of plasma from hypophyseal-portal vessel blood on adrenal ascorbic acid») 1956. enlaceLo documentado es que la sangre de los vasos del sistema portal hipofisario de perro llevaba actividad liberadora de ACTH, y que el método de recogida de Porter se volvió el estándar para muestrear esa sangre (lo resume la historia abierta de la recogida de sangre portal, J. Neuroendocrinol. 2021). Lo que la clase le atribuye —que capilares individuales del sistema portal tienen concentraciones distintas de la misma hormona hipotalámica, y que el hipotálamo desvía la hormona hacia un tipo de célula u otro— no se ha podido localizar en ningún trabajo recuperado: puede ser un artículo posterior de su grupo que no hemos encontrado, o una compresión de la literatura de control local. La clase remata la anécdota con que él mismo pasó dos años de postdoc aprendiendo a canular uno solo de esos vasos. Queda como mapeo candidato, con confianza baja, y por eso la lectura lo presenta con esa cautela.
Clase 16 · El mensaje depende de quien escucha · 12 fuentes
- 16M. Brown, S. Dainty, N. Strudwick, A. D. Mihai, J. N. Watson, R. Dendooven, A. W. Paton, J. C. Paton y M. Schröder El estrés del retículo endoplásmico agota los receptores de insulina de la superficie (fuente candidata: la clase no nombra a nadie). Molecular Biology of the Cell 31(23):2597-2629 2020. enlaceEs el artículo que mejor encaja con el pasaje que la clase lee en voz alta, en primera persona del plural y como prosa seguida (min. 5:30-6:30), sin nombrar autor, revista ni año. Coincide punto por punto: la acumulación de proteínas desplegadas en el retículo endoplásmico provoca estrés del retículo; ese estrés bloquea el transporte de los receptores de insulina recién fabricados desde el retículo hasta la superficie; el equilibrio entre producción y retirada agota el receptor en la membrana y la respuesta celular a la insulina cae. El trabajo rechaza de forma explícita la explicación por degradación —«increased turnover and degradation of cell surface-exposed insulin receptors cannot explain the loss of insulin receptors»—, que es justo la pieza que la clase usa como contrapeso. Identificación por contenido y no por atribución: él no da ningún nombre.
- 16U. Özcan, Q. Cao, E. Yilmaz, A.-H. Lee, N. N. Iwakoshi, E. Özdelen, G. Tuncman, C. Görgün, L. H. Glimcher y G. S. Hotamisligil La cadena obesidad, estrés del retículo endoplásmico y resistencia a la insulina (fuente clásica; la clase no la nombra). Science 306(5695):457-461 2004. enlaceFuente clásica de la parte que la clase presenta como conocimiento general: la obesidad provoca estrés del retículo endoplásmico y ese estrés suprime la señalización de la insulina por hiperactivación de JNK y fosforilación en serina del sustrato del receptor. No es la fuente del mecanismo de pérdida de receptores, que es el trabajo de Brown y colaboradores: la clase funde las dos historias en una sola. El marco de «cuánto gritas frente a cuánto te escuchan» es un recurso didáctico suyo que no está en ninguno de los dos artículos.
- 16A. Vyas, R. Mitra, B. S. Shankaranarayana Rao y S. Chattarji Estrés crónico: atrofia dendrítica en el hipocampo e hipertrofia en la amígdala (fuente candidata; la clase no la nombra). Journal of Neuroscience 22(15):6810-6818 2002. enlaceEn ratas, el estrés crónico por inmovilización produce atrofia y pérdida de ramificaciones en las neuronas piramidales CA3 del hipocampo y, en marcado contraste, más arborización dendrítica en el complejo basolateral de la amígdala, junto con más conducta de ansiedad en el laberinto elevado. La dirección del efecto coincide exactamente con lo que cuenta la clase; el trabajo, sin embargo, es un estudio de Golgi sobre arborización dendrítica y no mide «aprender a tener miedo» ni la excitabilidad sináptica, que él añade de la literatura más amplia. La mitad del hipocampo tiene fuentes propias más antiguas, citadas dentro del propio artículo.
- 16Ninguna referencia identificada: la clase dice «varios laboratorios, incluido el mío» y no nombra a nadie El puzle del cofactor del receptor de glucocorticoides: la misma hormona, el mismo receptor y efectos opuestos (sin artículo concreto identificado). Revisión de la literatura sobre correceptores de receptores esteroideos. enlaceSin resolver en el nivel concreto que da la clase. Lo que sí está documentado es el mecanismo general que invoca: la transcripción mediada por receptores esteroideos en el cerebro es específica de región y de tipo celular en buena parte porque los correceptores nucleares, coactivadores y correpresores, se expresan de manera específica de cada área cerebral. Lo que no aparece en ninguna fuente consultada es la versión binaria que él cuenta: un sitio de unión menor al que se une un cofactor que está presente en el hipocampo y ausente en la amígdala e invierte el signo de la respuesta genómica al mismo receptor y el mismo promotor. Ficha de baja confianza y marcada como no resuelta.
- 16G. E. Gillies, E. A. Linton y P. J. Lowry La vasopresina multiplica la liberación de ACTH que provoca la CRH (fuente candidata; la clase no la nombra). Nature 299(5881):355-357 1982. enlace«...When given simultaneously with vasopressin a fourfold potentiation of CRF activity with steep dose-response characteristics were observed.» La sinergia entre CRH y vasopresina en el corticotropo es el ejemplo de manual de neuromodulación en el eje del estrés, y coincide con lo que cuenta la clase. Con una salvedad: el «no tiene ningún efecto en absoluto por sí sola» es simplificación suya. El artículo describe la vasopresina como secretagogo de ACTH por derecho propio, solo que menos potente que la CRF; en humanos eleva el ACTH también ella sola. Él no nombra a nadie.
- 16H. Möhler y T. Okada (1977); de forma independiente, C. Braestrup y R. F. Squires (1977) El descubrimiento del sitio alostérico del receptor GABA-A al que se unen los tranquilizantes. Revistas de farmacología; los datos exactos de revista y páginas no se recuperaron en esta pasada 1977. enlace«In 1977, two separate groups utilized radiolabeled diazepam (DZP) binding to brain extracts to identify benzodiazepine receptors (BZRs) in the central nervous system (CNS)». Es el hallazgo histórico que hay detrás de la afirmación de la clase de que el receptor de GABA lleva bolsillos alostéricos distintos. Dos salvedades: el orden histórico es el inverso al que cuenta él, porque lo que se descubrió en 1977 fue el sitio de las benzodiacepinas —de ahí el nombre estándar—, y el de los barbitúricos es un sitio modulador distinto, caracterizado después; y la jerarquía de tranquilizante mayor y menor es una etiqueta clínica de potencia, no la clasificación farmacológica de los sitios. No nombra a nadie.
- 16D. Belelli y J. J. Lambert Neuroesteroides: moduladores endógenos del receptor GABA-A (revisión del trabajo de base; la clase no la nombra). Nature Reviews Neuroscience 6(7):565-575 2005. enlace«Certain naturally occurring pregnane steroids can potently and specifically enhance GABA-A receptor function in a nongenomic (direct) manner, and consequently have anxiolytic, analgesic, anticonvulsant, sedative, hypnotic and anaesthetic properties.» El prototipo es la alopregnanolona, metabolito de la progesterona, y el efecto no va por el sitio de las benzodiacepinas. El fenómeno está sólido; lo que la clase presenta como un tercer sitio de unión ya asentado seguía en discusión décadas después, hasta el punto de que una revisión de 2024 se titula «Forty Years Searching for Neurosteroid Binding Sites on GABA-A Receptors». Él funde además la progesterona con sus metabolitos neuroactivos, que son los realmente potentes. No nombra a nadie.
- 16Capítulo de libro; la lista de autores no se recuperó en esta pasada La búsqueda del ligando endógeno del sitio de las benzodiacepinas, las «endozepinas». Capítulo «Endozepines», manuscrito depositado en PubMed Central 2015. enlace«The romanticized quest for endozepines, endogenous ligands to the BZ-binding site, has uncovered a variety of ligands that might fulfill this role... The quest for the "brain's Valium" over the decades has been elusive as mainly negative allosteric modulatory effects have been observed.» La afirmación de la clase y su carácter de búsqueda todavía sin cerrar están respaldados; el candidato más estudiado es el inhibidor de la unión al diazepam. Los «40 años» que dice él encajan en el rango, pero no son una cifra de ninguna fuente. Es su punto metodológico más útil: si un fármaco actúa en un sitio, algo dentro del cerebro se le parece, y hay que ir a buscarlo.
- 16A. Caspi y colaboradores La lactancia materna y el cociente intelectual, moderados por una variante del gen FADS2 (el único gen que la clase nombra). Proceedings of the National Academy of Sciences 104(47):18860-18865 2007. enlace«Here we show that the association between breastfeeding and IQ is moderated by a genetic variant in FADS2, a gene involved in the genetic control of fatty acid pathways.» En la cohorte de Dunedin, los niños amamantados portadores del alelo C de rs174575 mostraban 6,4 puntos de ventaja sobre los no amamantados, mientras que los homocigotos GG no ganaban ni perdían nada con la lactancia. Es el único punto de la clase en que se nombra un gen concreto, y se presenta como repaso de una clase anterior. Aviso que él no da: este resultado es uno de los que peor han replicado en la literatura de genética del comportamiento.
- 16A. Caspi, J. McClay, T. E. Moffitt, J. Mill, J. Martin, I. W. Craig, A. Taylor y R. Poulton El gen de la MAOA y el maltrato infantil: el mejor candidato publicado (la clase no nombra ni el gen ni el artículo). Science 297:851 (volumen y primera página según el registro recuperado; la página final no se recuperó) 2002. enlace«A functional polymorphism in the gene encoding the neurotransmitter-metabolizing enzyme monoamine oxidase A (MAOA) was found to moderate the effect of maltreatment... Maltreated children with a genotype conferring high levels of MAOA expression were less likely to develop antisocial problems.» Es el candidato porque la clase no da ningún nombre —ni gen, ni autores, ni año— y solo describe la interacción: ningún efecto principal en una infancia normal y efecto únicamente junto con el maltrato; además avisa de que lo veremos más adelante en el curso. Lo que no cuenta es que este resultado es de los más contestados del área: los metaanálisis han salido mixtos y uno de 2022 no encuentra la interacción robusta.
- 16L. Guiso, F. Monte, P. Sapienza y L. Zingales Cultura, género y matemáticas: la brecha sigue la igualdad del país, e Islandia es donde se invierte (la clase no la nombra). Science 320(5880):1164-1165 (Education Forum) 2008. enlaceCon datos PISA de 2003 de 276.165 alumnos de 15 años en 40 países: «Girls' math scores average 10.5 lower than those of boys... but the results vary by country: in Turkey, -22.6, whereas, in Iceland, 14.5.» Cuanto más igualitaria es la sociedad, menor es la brecha en matemáticas y mayor la ventaja femenina en lectura. Es candidato y no fuente declarada: la clase no da autor, revista ni año, pero su elección de Islandia como emblema de la igualdad coincide exactamente con el estudio que puso a Islandia en cabeza de esa clasificación, con la brecha invertida.
- 16Ninguno identificado La composición de subunidades de los receptores NMDA y la plasticidad (sin estudio concreto nombrado). Revisión en una revista del grupo Nature (página consultada: nature.com/articles/nrn3504) 2013. enlaceLas revisiones del campo describen cómo la subunidad GluN2 de un receptor NMDA determina sus propiedades funcionales y su papel en la plasticidad, y recogen como hipótesis de trabajo que una composición de subunidades se encarga de la potenciación a largo plazo y otra de la depresión a largo plazo. Es la entrada a la afirmación general de la clase —la composición de subunidades de los receptores NMDA influye en la facilidad con que las neuronas aprenden— y no su fuente: él no cita nada.